Rasio Unsur Hara Makro terhadap Nitrogen dalam Larutan Nutrisi Hidroponik
Tinjauan mengenai keseimbangan P, K, Ca, Mg, dan S terhadap Nitrogen pada sistem budidaya hidroponik.
Artikel 2 dari 4 yang membahas Nilai Rasio Pada Tanaman Sayuran Daun dan Tanaman Sayuran Berbuah).
3. Nilai Rasio pada Tanaman Sayuran Daun
3.1 Karakteristik Fisiologis yang Menentukan Rasio
Secara umum, pertumbuhan dan produksi sayuran daun mensyaratkan ketersediaan 16 unsur hara esensial yang meliputi unsur makro primer (N, P, dan K), unsur makro sekunder (Ca, Mg, dan S), serta unsur mikro (Fe, Mn, Zn, Cu, B, Mo, Cl, dan Ni) (Epstein & Bloom, 2005; Marschner, 2012). Di antara kelompok-kelompok tersebut, nitrogen (N) menempati posisi sentral bagi sayuran daun karena kerapatan kanopi dan laju akumulasi biomassa daun sangat bergantung pada status hara N. Pada kondisi optimum, jaringan daun tanaman sayuran umumnya mengandung N sebesar 2,0–5,0% dari berat keringnya (Hochmuth & Hanlon, 2000). Besaran kebutuhan N ini bervariasi antarjenis; sebagai perbandingan, rekomendasi pemupukan N untuk sayuran daun di Florida berkisar antara 90 lb·acre⁻¹ untuk bayam hingga 200 lb·acre⁻¹ untuk selada jenis kepala dan romaine (Liu et al., 2023).
Dalam praktik pemupukan, kebutuhan unsur hara lain sering dinyatakan sebagai rasio terhadap N karena penyerapan N dijadikan acuan ritme penyerapan unsur lainnya. Formulasi larutan hara hidroponik untuk selada yang umum digunakan menetapkan rasio K:N sebesar ±1,1 dan P:N sebesar ±0,3 (Resh, 2012). Pendekatan perbandingan terhadap N juga menjadi dasar penyusunan formulasi larutan hara bagi berbagai sayuran rumah kaca (Sonneveld & Voogt, 2009). Pertimbangan yang sama berlaku pada kelompok kation K–Ca–Mg yang bersaing dalam proses penyerapan oleh akar, sehingga ketidakseimbangan salah satu unsur akan mengganggu status hara unsur lainnya (Marschner, 2012). Dengan demikian, penentuan rasio hara yang optimum bagi sayuran daun tidak cukup hanya menjamin ketersediaan N yang tinggi, melainkan juga keseimbangan rasio hara lainnya.
Tanaman sayuran daun memiliki profil kebutuhan hara yang berbeda dengan tanaman berbuah. Ciri utamanya adalah kebutuhan nitrogen (N) yang relatif tinggi, mengingat N merupakan unsur penyusun utama klorofil dan protein yang mendominasi biomassa daun (Marschner, 2012). Selain N, kalsium (Ca) juga merupakan unsur kritis pada sayuran daun karena laju pertumbuhan daun yang cepat menuntut pasokan Ca yang kontinu untuk pembentukan dinding sel pada jaringan baru (Sonneveld & Voogt, 2009).
3.2 Selada (Lactuca sativa L.)
Selada merupakan salah satu sayuran daun yang paling peka terhadap gangguan fisiologis tipburn, yaitu nekrosis pada tepi daun muda yang sedang mengalami perluasan. Tipburn berkaitan erat dengan rendahnya ketersediaan kalsium pada jaringan daun muda. Kalsium (Ca) bersifat hampir tidak bergerak (immobile) dalam jaringan tumbuhan sehingga suplainya bergantung pada aliran massa xilem yang mengikuti laju transpirasi (Barta & Tibbitts, 1991, 2000). Oleh karena itu, keseimbangan antara pasokan Ca relatif dan laju pertumbuhan daun menjadi penentu utama kejadian tipburn (Collier & Tibbitts, 1982; Ollé & Bender, 2009).
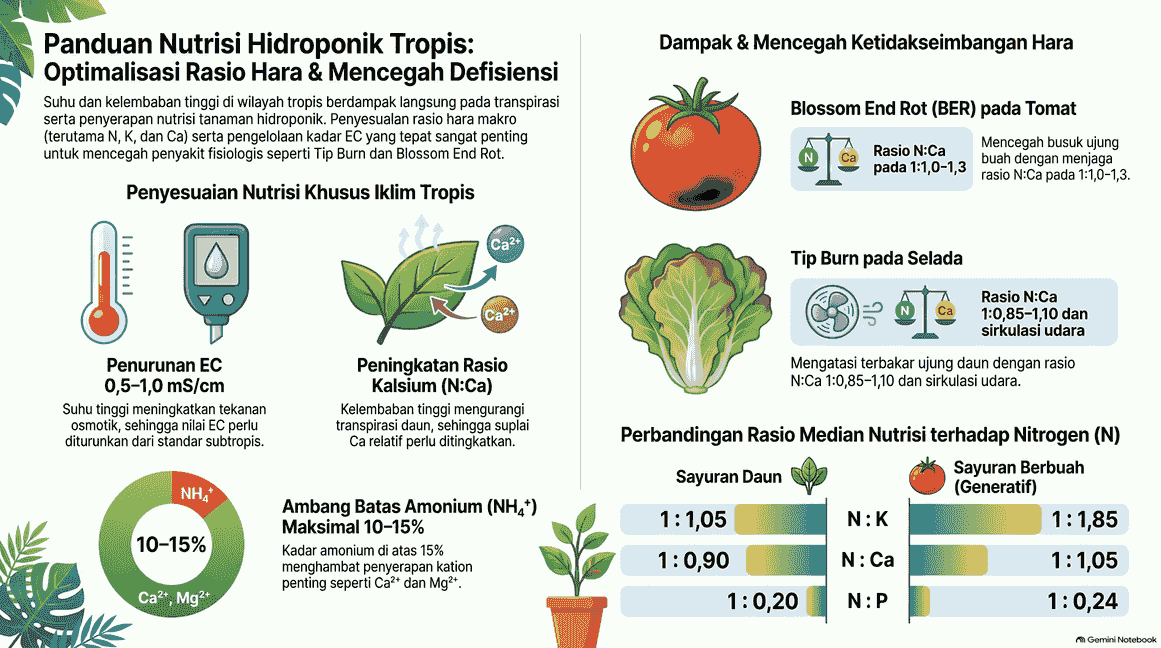
Dengan pertimbangan tersebut, formulasi untuk kondisi pertumbuhan cepat pada iklim tropis menetapkan rasio Ca terhadap N lebih tinggi (0,80–1,08) dibandingkan formulasi beriklim sedang yang umumnya berada pada kisaran 0,55–0,65 (lihat Tabel 3.1; Sonneveld & Voogt, 2009). Pada praktik hidroponik dengan sistem nutrient film technique (NFT), pengelolaan konduktivitas listrik (EC) larutan nutrisi dan aplikasi Ca terbukti memengaruhi hasil serta keparahan tipburn pada selada (Samarakoon et al., 2020).
| Sumber | N | P | K | Ca | Mg | S | P/N | K/N | Ca/N | Mg/N | S/N |
|---|---|---|---|---|---|---|---|---|---|---|---|
| Sonneveld & Straver (1994) | 142 (NO₃-N 133 + NH₄-N 8,75) | 31 | 215 | 90 | 12 | 18 | 0,22 | 1,52 | 0,63 | 0,085 | 0,13 |
| Mattson & Peters (2014), resep Sonneveld modifikasi | 150 | 31 | 210 | 90 | 24 | – | 0,21 | 1,40 | 0,60 | 0,16 | – |
| Formulasi Huett & Dettmann (1994) | 116 | 22 | 201 | 70 | 20 | 26 | 0,19 | 1,73 | 0,60 | 0,17 | 0,22 |
| Formula Resh untuk Lettuce Anguila (2006, dikutip dalam Frasetya et al., 2019) | 185 | 50 | 210 | 200 | 50 | 66 | 0,27 | 1,14 | 1,08 | 0,27 | 0,36 |
| Sutiyoso (2006, dikutip dalam Frasetya et al., 2019) | 250 | 75 | 350 | 200 | 75 | 135 | 0,30 | 1,40 | 0,80 | 0,30 | 0,54 |
Catatan: tanda “–” berarti data tidak dicantumkan pada sumber.
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,20–0,25 | 0,10–0,30 | < 0,07; > 0,45 | Mattson & Peters (2014); Neocleous & Savvas (2019) |
| K : N | 1,1–1,6 | 0,9–2,0 | < 0,8; > 2,2 | Sonneveld & Straver (1994); Sonneveld & Voogt (2009) |
| Ca : N | 0,55–0,65 | 0,40–0,95 | < 0,30; > 1,00 | Ollé & Bender (2009); Sonneveld & Voogt (2009) |
| Mg : N | 0,08–0,16 | 0,06–0,25 | < 0,05; > 0,30 | Sonneveld & Straver (1994); Sonneveld & Voogt (2009) |
| S:N | 0,13—0,54 | 0,09-0,68 | < 0,07; > 0,81 | Sonneveld & Straver (1994), Frasetya et al., (2019) |
Kajian formula lokal pada sistem rakit apung di daerah tropis (Jatinangor, 700 m dpl) menguji lima formula dan menyimpulkan bahwa formula Sutiyoso (N 250, P 75, K 350, Ca 200, Mg 75 mg·L⁻¹; P/N 0,30; K/N 1,40; Ca/N 0,80; Mg/N 0,30) merupakan yang paling efektif untuk selada tropis. Hasil ini disertai perbandingan rasio masing-masing formula terhadap N (Frasetya et al., 2019). Hasil tersebut menunjukkan bahwa formula lokal tropis cenderung memiliki N dan K lebih tinggi daripada resep Belanda untuk selada, yang konsisten dengan laju pertumbuhan dan intensitas cahaya yang lebih tinggi di wilayah tropis (Frasetya et al., 2019; Mattson & Peters, 2014).
3.3 Sawi dan Pakcoy (Brassica rapa)
Sayuran daun dari suku Brassicaceae umumnya menunjukkan laju pertumbuhan dan kebutuhan nitrogen (N) yang lebih tinggi dibandingkan selada. Pedoman produksi Cornell menetapkan target N 150 mg·L⁻¹ untuk selada kepala dan sayuran daun umum, tetapi 175–200 mg·L⁻¹ untuk kale, Swiss chard, dan mustard greens (Mattson & Peters, 2014). Kajian Currey, Yost, dan Sporer (2026) terhadap empat sayuran daun khusus memperkuat pedoman tersebut; bobot kering bibit arugula (Eruca sativa), kale (Brassica oleracea), dan Swiss chard (Beta vulgaris) meningkat seiring kenaikan konsentrasi pupuk hingga 200 mg·L⁻¹ N, sedangkan respons serupa tidak teramati pada pakcoy (B. rapa subsp. chinensis). Temuan ini mengindikasikan bahwa pakcoy memiliki kebutuhan N yang lebih rendah dan toleran terhadap larutan encer dibandingkan kerabat Brassicaceae-nya. Pada fase pembesaran, kebutuhan EC arugula dan pakcoy relatif rendah (0,5–2,0 mS·cm⁻¹), sedangkan kale dan Swiss chard—yang secara taksonomi berada di luar suku Brassicaceae namun sering dibudidayakan bersama—memerlukan EC > 1,0 mS·cm⁻¹ hingga sekitar 2,0 mS·cm⁻¹ untuk memaksimalkan hasil dan kualitas (Currey et al., 2026).
Rentang rasio hara terhadap N untuk sawi dan pakcoy direkapitulasikan pada Tabel 3.3. Dibandingkan dengan selada (Tabel 3.2), Brassicaceae menunjukkan kebutuhan K:N yang lebih tinggi (1,2–1,6) dan rentang Mg:N yang lebih lebar (0,15–0,30), sejalan dengan laju pertumbuhan yang lebih tinggi (Mattson & Peters, 2014). Rasio bentuk nitrogen optimum berada pada kisaran NO₃⁻:NH₄⁺ = 75:25 hingga 80:20; peningkatan fraksi NH₄⁺ hingga 50% memicu toksisitas amonium dan penurunan biomassa pada kerabat Brassica rapa (Zhu et al., 2021), sedangkan sekitar 23% NH₄⁺ direkomendasikan untuk hidroponik daun di daerah tropis (Wenceslau et al., 2021). Keunggulan NH₄⁺ parsial antara lain penurunan kandungan nitrat jaringan dan peningkatan efisiensi penggunaan N (Zhu et al., 2021).
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,18–0,28 | 0,14–0,35 | < 0,09; > 0,40 | Mattson & Peters (2014); Frasetya dkk. (2019) |
| K : N | 1,2–1,6 | 1,0–2,0 | < 0,9; > 2,2 | Frasetya dkk. (2019); Mattson & Peters (2014) * |
| Ca : N | 0,60–0,80 | 0,45–1,00 | < 0,35; > 1,10 | Frasetya dkk. (2019); Savvas dkk. (2008)* |
| Mg : N | 0,15–0,30 | 0,10–0,40 | < 0,07; > 0,50 | Frasetya dkk. (2019)* |
| S:N | 0,13—0,54 | 0,09-0,68 | < 0,07; > 0,81 | Sonneveld & Straver (1994), Frasetya et al., (2019) * |
| NO₃⁻ : NH₄⁺ | 80:20 – 75:25 | 100:0 – 70:30 | < 60:40 | Wenceslau dkk. (2021); Zhu dkk. (2020) |
| EC (mS·cm⁻¹) | 0,5–2,0 | — | > 2,0–3,0 (bobot arugula dan pakcoy menurun) | Currey dkk. (2026); Mattson & Peters (2014) |
Catatan: *Estimasi berdasarkan prinsip fisiologis dan perbandingan dengan komoditas terdekat; bukan hasil uji banding rasio spesifik..
3.4 Kale (Brassica oleracea var. sabellica)
Kale tergolong tanaman dengan kebutuhan hara tinggi (heavy feeder): Mattson dan Peters (2014) menempatkannya pada kelompok dengan target N 175–200 mg·L⁻¹, lebih tinggi daripada selada. Karena kale merupakan anggota Brassicaceae, kebutuhan S-nya relatif lebih tinggi untuk sintesis glukosinolat, sehingga rasio S/N pada bagian atas rentang (0,15–0,25) lebih tepat; namun bukti dosis-respons kuantitatif untuk kale hidroponik masih terbatas sehingga angka ini bersifat estimasi (*).
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,18–0,25 | 0,14–0,31 | < 0,09 ; > 0,38 | Mattson & Peters (2014)* |
| K : N | 1,10–1,50 | 0,83–1,88 | < 0,55 ; > 2,25 | Mattson & Peters (2014)* |
| Ca : N | 0,55–0,85 | 0,41–1,06 | < 0,28 ; > 1,28 | Mattson & Peters (2014); Sonneveld & Voogt (2009)* |
| Mg : N | 0,12–0,25 | 0,09–0,31 | < 0,06 ; > 0,38 | Mattson & Peters (2014)* |
| S : N | 0,15–0,25 | 0,11–0,31 | < 0,08 ; > 0,38 | FAO (2006); Fahey dkk. (2001)* |
| EC (mS·cm⁻¹) | ≥1,0 | 1,0–2,6 | < 1,0 (hasil turun) | Currey dkk. (2026) |
Catatan: * Estimasi berdasarkan prinsip fisiologis dan perbandingan dengan komoditas terdekat; bukan hasil uji banding rasio spesifik..
3.5 Seledri (Apium graveolens) dan Bawang Daun (Allium fistulosum)
Literatur yang menguji rasio hara secara spesifik pada seledri dan bawang daun masih jauh lebih sedikit dibandingkan pada selada dan tanaman dari famili Brassicaceae. Oleh karena itu, nilai pada Tabel 3.4 disusun sebagai estimasi berdasarkan dasar fisiologis yang dinyatakan secara eksplisit, bukan hasil uji banding rasio. Pertama, pada seledri, daun-daun muda berada di bagian dalam tajuk yang dilindungi oleh daun keliling sehingga tingkat transpirasinya rendah. Karena kalsium (Ca) hampir sepenuhnya tersuplai melalui aliran xilem yang mengikuti laju transpirasi, jaringan tersebut menjadi rentan terhadap defisiensi Ca lokal. Defisiensi ini muncul sebagai gangguan fisiologis blackheart, yaitu nekrosis jaringan hati tanaman yang diperberat oleh pemupukan nitrogen (N) dan kalium (K) berlebihan, serta fluktuasi kelembapan media (Geraldson, 1953; Ollé & Bender, 2009). Kedua, seledri merupakan sayuran daun dengan kebutuhan N tertinggi di antara sayuran daun, menurut pedoman pemupukan lapangan Cornell (Reiners et al., 2023; Hochmuth & Hanlon, 2000; Liu et al., 2023). Dengan demikian, rasio hara lainnya terhadap N harus mengakomodasi tingkat konsentrasi N yang tinggi pula. Ketiga, pada bawang daun, belerang (S) merupakan komponen senyawa khas pembentuk rasa dan aroma (alliin dan turunannya). Oleh karena itu, ketersediaan S perlu dijaga pada kisaran optimal (Marschner, 2012; Roy et al., 2006).
| Komoditas | Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|---|
| Seledri | K : N | 1,20–1,60 | 0,90–2,00 | < 0,60 ; > 2,40 | Cornell (2023); Sonneveld & Straver (1994)* |
| Seledri | Ca : N | 0,60–0,90 | 0,45–1,13 | < 0,30 ; > 1,35 | Olle & Bender (2009)* |
| Seledri | Mg : N | 0,12–0,25 | 0,09–0,31 | < 0,06 ; > 0,38 | Sonneveld & Voogt (2009)* |
| Seledri | P : N | 0,15–0,25 | 0,11–0,31 | < 0,08 ; > 0,38 | Mattson & Peters (2014)* |
| Bawang daun | K : N | 1,00–1,50 | 0,75–1,88 | < 0,50 ; > 2,25 | Liu dkk. (2023)† |
| Bawang daun | Ca : N | 0,50–0,75 | 0,38–0,94 | < 0,25 ; > 1,13 | Olle & Bender (2009)* |
| Bawang daun | S : N | 0,18–0,30 | 0,14–0,38 | < 0,09 ; > 0,45 | Marschner (2012); Teagasc (2020)* |
| Bawang daun | Mg : N | 0,12–0,22 | 0,09–0,28 | < 0,06 ; > 0,33 | Sonneveld & Voogt (2009)* |
Catatan: * Estimasi berdasarkan prinsip fisiologis dan analogi komoditas terdekat; bukan hasil uji banding rasio spesifik.
3.6 Sintesis untuk Sayuran Daun
Pola yang muncul dari Tabel 3.1–3.4 dapat diringkas sebagai berikut. Pada sayuran daun, nitrogen (N) berperan sebagai pengendali hasil, sedangkan kalsium (Ca) berperan sebagai pengendali kualitas. Konsekuensinya, rasio Ca:N dan K:Ca lebih menentukan keberhasilan komersial daripada rasio N:P. Berdasarkan penelaahan rentang ideal pada keempat tabel sebelumnya, nilai yang konsisten lintas komoditas adalah Ca:N 0,50–0,90; K:N 1,0–1,6; Mg:N 0,08–0,16 (untuk selada) hingga 0,15–0,30 (untuk Brassicaceae dan formula tropis); serta P:N 0,15–0,28.
Di antara seluruh rasio yang dibahas, perbandingan bentuk nitrogen memiliki titik kritis paling tegas: penyimpangan pertumbuhan mulai terjadi ketika fraksi NH₄⁺ melampaui ±40% dari total N (Wenceslau et al., 2021; Zhu et al., 2021). Konsistensi nilai-nilai tersebut sejalan dengan temuan bahwa komoditas yang berbeda menyerap unsur hara dalam proporsi yang berbeda meskipun larutan yang disuplai identik. Oleh karena itu, satu formulasi larutan tidak dapat diterapkan secara seragam untuk semua komoditas tanpa penyesuaian rasio (de Kreij et al., 1999; Sonneveld & Voogt, 2009).
Nilai yang konsisten lintas komoditas (rentang ideal terhadap N, basis massa).
Pilih pasangan rasio untuk membandingkan seluruh komoditas. Sayuran berbuah memakai fase generatif.
4. Nilai Rasio pada Tanaman Sayuran Berbuah
4.1 Karakteristik Fisiologis yang Menentukan Rasio
Tanaman sayuran berbuah menunjukkan pola kebutuhan hara yang berbeda, baik secara kualitatif maupun kuantitatif, dibandingkan dengan sayuran daun. Perbedaan utama mencakup tiga aspek. Pertama, kebutuhan kalium (K) yang tinggi untuk pembentukan dan pematangan buah, mengingat K berperan dalam transokasi dan pengisian gula ke jaringan buah. Kedua, kebutuhan kalsium (Ca) yang kritis bagi integritas struktural buah, karena gangguan fisiologis seperti blossom-end rot (BER) berkaitan dengan defisiensi Ca lokal pada ujung buah. Ketiga, perubahan rasio hara yang dinamis sepanjang siklus pertumbuhan dari fase vegetatif ke generatif (Adams, 2002; Savvas et al., 2013).
Pola dinamis tersebut dapat dijelaskan sebagai berikut. Setelah pembungaan, kebutuhan K meningkat tajam seiring bertambahnya muatan buah, sedangkan kebutuhan Ca terus berlangsung untuk pertumbuhan jaringan baru dan pencegahan gangguan fisiologis buah. Akibatnya, fraksi K dalam komposisi nutrisi perlu dinaikkan secara bertahap selama fase pembuahan hingga mendekati dua kali fraksi awal, sementara konsentrasi Ca dipertahankan relatif konstan meskipun proporsinya terhadap total hara menurun seiring meningkatnya dominasi K (Adams, 2002; Sonneveld & Voogt, 2009). Penyesuaian komposisi nutrisi berdasarkan stadia pertumbuhan inilah yang menjadi prinsip dasar pengelolaan pemupukan tanaman berbuah, berbeda dengan sayuran daun yang cenderung memerlukan komposisi yang stabil sepanjang siklus pertumbuhannya.
Dari sisi kualitas buah, pengelolaan konduktivitas listrik (EC) larutan nutrisi menunjukkan kompromi yang terdokumentasi dengan baik: peningkatan EC hingga kisaran sedang meningkatkan padatan terlarut dan keasaman buah tomat, tetapi pada tingkat yang lebih tinggi, hasil mulai menurun (Dorais et al., 2001). Dengan demikian, kisaran EC 2,0–2,5 mS·cm⁻¹ yang lazim dipakai dalam produksi komersial dipandang sebagai titik optimum antara peningkatan kualitas dan pemulihan hasil (interpretasi penulis berdasarkan Dorais et al., 2001). Perlu ditekankan bahwa penekanan BER terutama ditentukan oleh ketersediaan dan transportasi Ca ke jaringan ujung buah, yang dipengaruhi oleh kelembapan udara dan laju transpirasi, bukan oleh EC semata; oleh karena itu, pengelolaan EC harus dibarengi dengan pengendalian suplai Ca dan kondisi mikroklimat (Saure, 2001).
4.2 Tomat (Solanum lycopersicum)
Tomat menempati posisi tertinggi dalam hierarki kebutuhan hara di antara sayuran berbuah, baik dari segi konsentrasi maupun dinamika perubahannya sepanjang siklus. Serapan N dan K mencapai puncak pada 8–14 minggu pertama pertumbuhan, diikuti oleh puncak kedua setelah buku buah pertama dipanen. Oleh karena itu, suplai N yang tinggi diperlukan pada awal musim dan dilanjutkan setelah inisiasi buah (Haifa Group, n.d.).
Pada fase vegetatif, konsentrasi N harus dijaga tetap rendah (90–120 mg·L⁻¹ NO₃-N) karena kelebihan N memicu pertumbuhan vegetatif yang berlebihan, batang menebal, daun keriting, dan jumlah bunga per buku menurun. Konsentrasi N kemudian dinaikkan secara bertahap hingga 190–250 mg·L⁻¹ pada fase generatif, bersamaan dengan lonjakan K dan Ca untuk pengisian buah dan pencegahan Blossom End Rot (BER) (Kroggel & Kubota, 2018). Konsekuensinya, rasio hara terhadap N bersifat dinamis. Rasio K/N bergeser dari 1,6 pada fase vegetatif menjadi 1,8–2,0 pada fase generatif, sementara rasio Ca/N justru menurun dari 1,6 menjadi 1,0, meskipun konsentrasi absolut Ca dinaikkan dari 144 menjadi 200 mg·L⁻¹ (Tabel 4.1). Fraksi NH₄⁺ harus dibatasi pada 5–10% dari total N karena NH₄⁺ bersaing dengan Ca²⁺ dalam penyerapan akar, menurunkan pH larutan, dan meningkatkan kejadian BER (Ho & White, 2005; Sonneveld & Voogt, 2009).
| Sumber / stadia | N | P | K | Ca | Mg | S | P/N | K/N | Ca/N | Mg/N | S/N |
|---|---|---|---|---|---|---|---|---|---|---|---|
| Sonneveld & Straver (1994), standar | 228 | 39 | 264 | 200 | 42 | 56 | 0,17 | 1,16 | 0,88 | 0,19 | 0,25 |
| Haifa Group (n.d.), rekomendasi umum | 250 | 63 | 425 | 200 | 63 | 38 | 0,25 | 1,70 | 0,80 | 0,25 | 0,15 |
| Haifa Group (n.d.), fase 1 (perakaran) | 254 | 89 | 266 | 180 | 80 | – | 0,35 | 1,05 | 0,71 | 0,31 | – |
| Haifa Group (n.d.), fase 2 (produksi) | 245 | 63 | 400 | 170 | 80 | – | 0,26 | 1,63 | 0,69 | 0,33 | – |
| Jensen/UA-CEA 3-stadia, S1 (vegetatif) (dalam Kroggel & Kubota, 2018) | 90 | 47 | 144 | 144 | 60 | – | 0,52 | 1,60 | 1,60 | 0,67 | – |
| Jensen/UA-CEA 3-stadia, S3 (generatif) (dalam Kroggel & Kubota, 2018) | 190 | 47 | 350 | 200 | 60 | – | 0,25 | 1,84 | 1,05 | 0,32 | – |
Catatan: * Estimasi berdasarkan prinsip fisiologis dan analogi komoditas terdekat; bukan hasil uji banding rasio spesifik. Tanda “–” berarti data tidak dicantumkan pada sumber.
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,17–0,25 | 0,12–0,35 | < 0,08; > 0,45 | Sonneveld & Straver (1994); Kroggel & Kubota (2018); Rietra et al. (2017) |
| K : N, vegetatif | 1,05–1,60 | 0,90–2,00 | < 0,80 (vigor vegetatif berlebih) | Kroggel & Kubota (2018); Sonneveld & Voogt (2009) |
| K : N, generatif | 1,60–2,00 | 1,40–3,00 | > 3,0 (penekanan Ca dan Mg) | Kroggel & Kubota (2018); Rietra et al. (2017)*; Cardoso et al. (2017)* ‡ |
| Ca : N | 0,70–1,10 | 0,50–1,30 | < 0,45 (risiko BER); > 1,50 | Sonneveld & Straver (1994); Kroggel & Kubota (2018); Ho & White (2005) |
| Mg : N | 0,18–0,33 | 0,12–0,45 | < 0,10 (klorosis interveinal); > 0,60 | Kroggel & Kubota (2018); Sonneveld & Voogt (2009) |
| S : N | 0,12–0,25 | 0,08–0,35 | < 0,07 (defisiensi S indusif) | Sonneveld & Straver (1994); Roy et al. (2006) |
| K : Ca | 1,3–2,0 | 1,1–2,8 | > 3,0 (kejadian BER naik tajam) | Ho & White (2005); Ollé & Bender (2009) |
| NO₃⁻ : NH₄⁺ | 90:10 – 95:5 | 100:0 – 85:15 | < 80:20 (penekanan Ca dan Mg, pH turun) | Sonneveld & Voogt (2009); Adams (2002); Ho & White (2005) |
Pilih fase untuk melihat perubahan target (Kroggel & Kubota, 2018; Haifa Group, n.d.).
4.3 Cabai (Capsicum annuum)
Cabai menempati posisi menengah dalam spektrum kebutuhan hara sayuran berbuah. Pembentukan buah yang berlangsung kontinu dan serempak sepanjang musim menuntut pasokan K yang tinggi untuk pengisian buah, sementara jaringan buah muda tetap rentan terhadap gangguan fisiologis akibat defisiensi Ca lokal (busuk ujung buah). Kondisi ini pada cabai lebih ditentukan oleh kelembapan udara dan laju transpirasi daripada oleh ketersediaan Ca di larutan nutrisi semata (Sonneveld & Voogt, 2009).
Dibandingkan tomat, cabai lebih sensitif terhadap fraksi NH₄⁺ dalam larutan, sehingga bentuk nitrogen menjadi parameter pengelolaan yang lebih ketat (Van der Lugt et al., 2020). Di sisi lain, bukti empiris pada cabai ‘Chile de Agua’ menunjukkan bahwa hasil lebih ditentukan oleh konsentrasi total ion larutan (EC) daripada oleh variasi rasio N/K dalam rentang luas (García-Verdugo et al., 2012). Dengan demikian, rasio hara terhadap N untuk cabai pada Tabel 4.3 menempatkan pengendalian bentuk N dan ketersediaan Ca sebagai prioritas utama, sedangkan rasio K:N diberi rentang toleransi yang lebih leluasa.
Pedoman teknis menyarankan pembatasan NH₄⁺ pada 5–15% dari total N, dengan konsentrasi maksimum 1–1,5 mmol·L⁻¹ (setara 14–21 mg·L⁻¹ N), untuk mencegah penurunan pH larutan yang berlebihan (Van der Lugt et al., 2020; Sonneveld & Voogt, 2009). Hasil percobaan pada cabai Huacle menunjukkan bahwa penambahan NH₄⁺ hingga 3,0 meq·L⁻¹ dalam larutan Steiner tidak menurunkan hasil secara konsisten dan bahkan meningkatkan produksi pada salah satu populasi. Hal ini menandakan bahwa batas toleransi amonium bergantung pada kultivar dan kondisi cahaya (Urbina-Sánchez et al., 2020). Pada cabai ‘Chile de Agua’, variasi rasio N/K (rendah/tinggi, normal/normal, tinggi/rendah) tidak mempengaruhi hasil maupun ukuran buah, sedangkan peningkatan konsentrasi ion total meningkatkan hasil. Hasil tertinggi (2.313,90 g per tanaman) diperoleh pada suplai larutan 100% dengan rasio N/K normal (García-Verdugo et al., 2012). Implikasi praktisnya, pada cabai konsentrasi total larutan (EC) lebih menentukan hasil daripada rasio N/K, dengan catatan bahwa rasio Ca:N tetap harus dijaga.
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,15–0,25 | 0,10–0,32 | < 0,08; > 0,45 | Savvas dkk. (2008); Sonneveld & Voogt (2009)* |
| K : N vegetatif | 1,1–1,5 | 0,9–1,8 | < 0,75 | Sonneveld & Straver (1994); Van der Lugt (2020)* |
| K : N , generatif | 1,6–2,0 | 1,4–2,5 | > 2,8 | García-Verdugo dkk. (2012); Cardoso dkk. (2017)* |
| Ca : N | 0,65–1,00 | 0,45–1,20 | < 0,40 (risiko busuk ujung buah dan gangguan Ca) | Savvas dkk. (2008); Ollé & Bender (2009) |
| Mg : N | 0,18–0,30 | 0,12–0,40 | < 0,10 | Savvas dkk. (2008); Sonneveld & Voogt (2009)* |
| NO₃⁻ : NH₄⁺ | 92:8 – 95:5 | 100:0 – 88:12 | ≤ 2,0 meq·L⁻¹ NH₄⁺ sebagai batas aman | Van der Lugt (2017); Sonneveld & Voogt (2009) |
Catatan: *Estimasi berdasarkan prinsip fisiologis dan perbandingan dengan komoditas terdekat; bukan hasil uji banding rasio spesifik.* pada cabai.
4.4 Melon (Cucumis melo) dan Timun (Cucumis sativus)
Melon dan timun, anggota famili Cucurbitaceae, menempati posisi paling menuntut di antara sayuran buah dalam hal kebutuhan kalium. Pengisian buah yang cepat dan berulang menjadikan kalium (K) sebagai unsur dominan dalam larutan nutrisi. Namun, kelebihan K bersifat ambivalen karena secara bersamaan menekan serapan kalsium (Ca) dan magnesium (Mg). Oleh karena itu, pengelolaan perbandingan K:Ca menjadi poros utama pemupukan komoditas ini (Rietra et al., 2017; de Kreij et al., 1999). Pada budidaya sistem tertutup, komposisi larutan suplai harus dibedakan dari target komposisi zona akar, sebab ion yang tidak terserap akan terakumulasi dalam sirkulasi dan mengubah rasio aktual yang diterima tanaman (de Kreij et al., 1999). Perbedaan kebutuhan spesifik antara melon dan timun tercermin pula pada formulasi klasik Yamazaki yang hingga kini menjadi rujukan utama kedua komoditas tersebut (Trejo-Téllez & Gómez-Merino, 2012). Rasio hara terhadap nitrogen (N) dari berbagai sumber disajikan pada Tabel 4.4, dan rentang yang dianjurkan pada Tabel 4.5.
Dua temuan spesifik yang penting untuk tanaman cucurbit perlu ditegaskan. Pertama, pada timun hidroponik NFT, rasio N:K (b/b) 1:2,0 dan 1:3,0 pada larutan fase generatif menghasilkan produktivitas tertinggi pada kedua hibrida yang diuji (masing-masing 972,15 g dan 670,90 g per tanaman pada rasio 1:3,0 untuk siklus 54 hari). Sementara itu, peningkatan K tidak mengubah panjang buah, tetapi memperbesar diameter dan bobot buah (Cardoso et al., 2017). Kedua, peningkatan K yang berlebihan dilaporkan menekan serapan N serta mengganggu serapan Mg dan Ca. Dengan demikian, batas atas K ditentukan oleh ketersediaan Ca (Rietra et al., 2017; de Kreij et al., 1999). Kedua temuan tersebut tidak bertentangan; keduanya menunjukkan bahwa kenaikan K bermanfaat sampai batas tertentu, dan batas tersebut ditentukan oleh ketersediaan Ca.
| Sumber / komoditas | N | P | K | Ca | Mg | P/N | K/N | Ca/N | Mg/N |
|---|---|---|---|---|---|---|---|---|---|
| Yamazaki, melon (dalam Trejo-Téllez & Gómez-Merino, 2012) | 200 | 40 | 234 | 140 | 37 | 0,20 | 1,17 | 0,70 | 0,19 |
| Yamazaki, timun (dalam Trejo-Téllez & Gómez-Merino, 2012) | 196 | 31 | 234 | 140 | 48 | 0,16 | 1,19 | 0,71 | 0,25 |
| Melon, larutan suplai standar (de Kreij et al., 1999) | 178 | 38 | 254 | 110 | 24 | 0,21 | 1,43 | 0,62 | 0,13 |
| Melon, target zona akar — tertutup (de Kreij et al., 1999) | 242 | 38 | 312 | 160 | 33 | 0,16 | 1,29 | 0,66 | 0,14 |
| Melon, target zona akar — terbuka (de Kreij et al., 1999) | 282 | 25 | 274 | 280 | 60 | 0,09 | 0,97 | 0,99 | 0,21 |
| Timun, larutan suplai standar (de Kreij et al., 1999) | 178 | 38 | 254 | 110 | 24 | 0,21 | 1,43 | 0,62 | 0,13 |
| Timun, target zona akar — tertutup (de Kreij et al., 1999) | 241 | 38 | 312 | 160 | 33 | 0,16 | 1,29 | 0,66 | 0,14 |
| Timun, target zona akar — terbuka (de Kreij et al., 1999) | 253 | 28 | 313 | 260 | 73 | 0,11 | 1,24 | 1,03 | 0,29 |
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,10–0,22 | 0,09–0,30 | < 0,06; > 0,40 | Trejo-Téllez & Gómez-Merino (2012) |
| K : N, vegetatif | 0,90–1,40 | 0,80–1,70 | < 0,75;>2,1 | Cardoso et al. (2017)*; Trejo-Téllez & Gómez-Merino (2012)* |
| K : N, generatif | 1,70–2,90 | 1,50–3,30 | < 1,4 (hasil turun); > 3,5 (penekanan Ca/Mg) | Cardoso et al. (2017); Rietra et al. (2017) |
| Ca : N | 0,65–0,95 | 0,45–1,15 | < 0,40;>1,43 | Trejo-Téllez & Gómez-Merino (2012); de Kreij et al. (1999) |
| Mg : N | 0,13–0,30 | 0,10–0,40 | < 0,08;>0,45 | Trejo-Téllez & Gómez-Merino (2012); de Kreij et al. (1999) |
| K : Ca | 1,00–3,00 | 0,80–3,50 | <0,50;> 4,0 (penurunan serapan Ca) | Rietra et al. (2017); de Kreij et al. (1999) |
4.5 Terong (Solanum melongena)
Terong menempati posisi yang khas di antara sayuran buah solanaceae: kebutuhan kaliumnya tinggi seperti tomat, tetapi kebutuhan dan laju serapan kalsiumnya lebih rendah. Oleh karena itu, terong secara alami beroperasi pada rasio kalium terhadap kalsium (K:Ca) yang lebih tinggi dibandingkan tomat maupun cabai (de Kreij et al., 1999; Savvas & Lenz, 1995). Konsekuensi fisiologisnya bersifat dwifungsi: dominasi kalium mendukung pengisian buah, namun kelebihan kalium yang tidak diimbangi kalsium menekan serapan kation divalen dan meningkatkan risiko gangguan fisiologis buah (Rietra et al., 2017). Pada sistem tertutup, penentuan target komposisi zona akar perlu dibedakan dari larutan suplai karena akumulasi ion yang tidak terserap dalam sirkulasi (de Kreij et al., 1999). Formulasi klasik Yamazaki dan target zona akar menurut pedoman Belanda disajikan pada Tabel 4.6, sedangkan rentang rasio yang dianjurkan untuk terong terdapat pada Tabel 4.7.
Terong memiliki kebutuhan kalsium lebih rendah dibandingkan tomat dan cabai, sebagaimana tercermin dari serapan kalsium semu (apparent uptake) yang lebih rendah pula (Savvas & Lenz, 1995). Meskipun demikian, terong rentan terhadap busuk internal buah yang berkaitan dengan defisiensi kalsium; kadar kalsium buah pada buah yang bergejala selalu lebih rendah daripada buah yang utuh (Savvas & Lenz, 1994). Data konsentrasi serapan lintas komoditas menunjukkan bahwa pada fase reproduktif, laju serapan fosfor dan kalsium terong setara dengan tomat, namun lebih rendah daripada timun untuk fosfor. Sementara itu, serapan kalsium terong merupakan yang terendah di antara ketiga spesies tersebut (de Kreij et al., 1999; Sonneveld & Voogt, 2009). Dengan demikian, formula nutrisi untuk terong sebaiknya memiliki rasio kalium terhadap nitrogen (K/N) lebih tinggi dan kalsium terhadap nitrogen (Ca/N) lebih rendah daripada tomat, dengan batas atas rasio K:Ca sekitar 4,0
| Sumber | N total | P | K | Ca | Mg | P/N | K/N | Ca/N | Mg/N |
|---|---|---|---|---|---|---|---|---|---|
| Yamazaki (dalam Trejo-Téllez & Gómez-Merino, 2012) | 154 | 31 | 274 | 60 | 24 | 0,20 | 1,78 | 0,39 | 0,16 |
| Terong, larutan suplai standar (de Kreij et al., 1999) | 179 | 31 | 254 | 90 | 37 | 0,17 | 1,42 | 0,50 | 0,21 |
| Terong, larutan suplai terbuka (de Kreij et al., 1999) | 242 | 39 | 264 | 130 | 61 | 0,16 | 1,09 | 0,54 | 0,25 |
| Terong, target zona akar terbuka (de Kreij et al., 1999) | 281 | 28 | 242 | 248 | 109 | 0,10 | 0,86 | 0,88 | 0,39 |
| Pasangan | Rentang ideal | Rentang toleransi | Titik kritis | Dasar |
|---|---|---|---|---|
| P : N | 0,14–0,20 | 0,09–0,28 | < 0,06;>0.30 | Trejo-Téllez & Gómez-Merino (2012); de Kreij et al. (1999) |
| K : N | 1,00–1,80 | 0,80–2,20 | < 0,75;>2,50 | Sonneveld & Straver (1994); de Kreij et al. (1999) |
| Ca : N | 0,40–0,90 | 0,30–1,00 | < 0,28 (risiko internal fruit rot) >1,35 | de Kreij et al. (1999); Savvas & Lenz (1994) |
| Mg : N | 0,16–0,40 | 0,12–0,50 | < 0,09;>0,60 | de Kreij et al. (1999); Savvas & Lenz (1995) |
4.6 Kerangka Rujukan Konsisten Lintas Komoditas
Perbandingan antarkomoditas paling dapat dipertanggungjawabkan apabila menggunakan satu set data yang disusun dengan metode yang sama. Brosur 196 dari Research Station for Floriculture and Glasshouse Vegetables (de Kreij et al., 1999) menyediakan set data tersebut, yaitu komposisi larutan suplai standar untuk sistem tertutup dan terbuka, serta nilai target pada larutan zona akar, untuk 20 komoditas termasuk tomat, cabai, terong, timun, dan melon. Tabel 4.8 menyajikan komoditas yang relevan bagi kajian ini.Ubah Tabel dalam basis masa (mg/l)
| Komoditas dan sistem | N total | P | K | Ca | Mg | S (SO₄) | P/N | K/N | Ca/N | Mg/N | S/N | K/Ca |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Tomat, tertutup | 179 | 39 | 254 | 110 | 24 | 48 | 0,22 | 1,42 | 0,62 | 0,14 | 0,27 | 2,31 |
| Tomat, terbuka | 242 | 47 | 371 | 216 | 58 | 141 | 0,19 | 1,54 | 0,89 | 0,24 | 0,58 | 1,72 |
| Tomat, target zona akar terbuka | 323 | 31 | 313 | 400 | 109 | 218 | 0,10 | 0,97 | 1,24 | 0,34 | 0,67 | 0,78 |
| Cabai, tertutup | 182 | 31 | 225 | 140 | 27 | 32 | 0,17 | 1,24 | 0,77 | 0,15 | 0,18 | 1,61 |
| Cabai, terbuka | 224 | 39 | 264 | 200 | 37 | 56 | 0,17 | 1,18 | 0,89 | 0,16 | 0,25 | 1,32 |
| Cabai, target zona akar terbuka | 239 | 37 | 196 | 340 | 73 | 96 | 0,16 | 0,82 | 1,42 | 0,30 | 0,40 | 0,58 |
| Terong, tertutup | 179 | 31 | 254 | 90 | 37 | 36 | 0,17 | 1,42 | 0,50 | 0,20 | 0,20 | 2,82 |
| Terong, terbuka | 242 | 39 | 264 | 130 | 61 | 48 | 0,16 | 1,09 | 0,54 | 0,25 | 0,20 | 2,03 |
| Terong, target zona akar terbuka | 281 | 28 | 242 | 248 | 109 | 96 | 0,10 | 0,86 | 0,88 | 0,39 | 0,34 | 0,98 |
| Timun, tertutup | 179 | 39 | 254 | 110 | 24 | 32 | 0,22 | 1,42 | 0,62 | 0,14 | 0,18 | 2,31 |
| Timun, terbuka | 242 | 39 | 313 | 160 | 33 | 44 | 0,16 | 1,29 | 0,66 | 0,14 | 0,18 | 1,96 |
| Timun, target zona akar terbuka | 253 | 28 | 313 | 260 | 73 | 112 | 0,11 | 1,23 | 1,03 | 0,29 | 0,44 | 1,20 |
| Melon, tertutup | 179 | 39 | 254 | 110 | 24 | 32 | 0,22 | 1,42 | 0,62 | 0,14 | 0,18 | 2,31 |
| Melon, target zona akar terbuka | 281 | 25 | 274 | 280 | 61 | 112 | 0,09 | 0,97 | 1,00 | 0,22 | 0,40 | 0,98 |
Keterangan: * Sesuai sumber. N total = NO₃-N + NH₄-N. Angka dapat menyimpang ±1 mg·L⁻¹ atau ±0,01 pada rasio dari Tabel 4.4/4.6 karena perbedaan pembulatan. EC larutan standar 1,7 (sistem tertutup) dan 2,1 mS·cm⁻¹ (sistem terbuka)
Tabel 4.8 memperlihatkan tiga pola penting yang tidak dapat diamati dari resep tunggal mana pun. Pertama, pada larutan suplai, rasio P/N relatif seragam antarkomoditas (0,16–0,22), demikian pula rasio K/N (1,09–1,54). Sebaliknya, rasio Ca/N dan Mg/N berbeda nyata: terong menunjukkan nilai terendah (Ca/N 0,50–0,54) dan cabai nilai tertinggi (Ca/N 0,77–0,89). Kedua, pada seluruh komoditas, Ca/N meningkat dari larutan suplai menuju target zona akar. Kenaikannya moderat (±1,05–1,45 kali) pada peralihan antarlarutan suplai, dan lebih besar (±1,6–2,0 kali) menuju target sistem terbuka.
Pola ini mencerminkan sifat Ca yang diabsorpsi akar lebih lambat daripada air dan unsur hara lain sehingga cenderung terakumulasi di zona akar (de Kreij et al., 1999). Ketiga, K/Ca turun dari 1,3–2,8 pada larutan suplai menjadi 0,6–1,2 pada target zona akar. Hal ini berarti rasio yang dihadapi akar secara nyata lebih rendah daripada rasio yang tercetak pada resep larutan. Ketiga pola tersebut menjelaskan mengapa rekomendasi yang dinyatakan sebagai konsentrasi larutan suplai dan rekomendasi yang dinyatakan sebagai target zona akar tidak dapat dibandingkan secara langsung,
4.7 Sintesis untuk Sayuran Berbuah
Perbandingan lintas komoditas memperlihatkan tiga pola. Pertama, rasio K:N pada fase generatif sayuran buah (1,6–2,9) secara konsisten lebih tinggi daripada sayuran daun (1,1–1,6), dengan puncaknya pada timun (Cardoso et al., 2017). Kedua, rasio Ca:N pada sayuran buah berkisar 0,40–1,10—rentangnya lebih lebar dan bergeser ke arah yang lebih tinggi daripada sayuran daun—karena kebutuhan Ca untuk penguatan dinding sel buah berbeda antarkomoditas dan antarstadia pertumbuhan (Kroggel & Kubota, 2018; de Kreij et al., 1999). Ketiga, toleransi terhadap NH₄⁺ lebih sempit pada sayuran buah (5–15% dari total N) daripada sayuran daun (20–25%), karena NH₄⁺ berkompetisi langsung dengan Ca²⁺ dan Mg²⁺ dalam penyerapan akar serta menurunkan pH larutan (Van der Lugt et al., 2020; Wenceslau et al., 2021). Pola-pola ini konsisten dengan temuan bahwa, pada komposisi larutan yang identik, laju serapan hara berbeda antarnspesies. Timun, tomat, dan terong menunjukkan profil serapan yang berbeda pada fase reproduktif, sehingga rasio suplai yang sesuai untuk satu spesies tidak otomatis sesuai untuk spesies lain (de Kreij et al., 1999; Sonneveld & Voogt, 2009).
Tiga pola lintas komoditas dari sintesis di atas.
Masukkan konsentrasi N, lalu lihat kisaran indikatif unsur lain berdasarkan rentang ideal pada tabel artikel. Bukan resep baku.
Daftar Pustaka
Adams, P. (2002). Nutritional control in hydroponics. In D. Savvas & H. C. Passam (Eds.), Hydroponic production of vegetables and ornamentals (pp. 211–261). Embryo Publications.
Barta, D. J., & Tibbitts, T. W. (1991). Calcium localization in lettuce leaves with and without tipburn: Comparison of controlled-environment and field-grown plants. Journal of the American Society for Horticultural Science, 116(5), 870–875. https://doi.org/10.21273/JASHS.116.5.870
Barta, D. J., & Tibbitts, T. W. (2000). Calcium localization and tipburn development in lettuce leaves during early enlargement. Journal of the American Society for Horticultural Science, 125(3), 294–298. https://doi.org/10.21273/JASHS.125.3.294
Barickman, T. C., Horgan, T. E., Wheeler, J. R., & Sams, C. E. (2016). Elevated levels of potassium in greenhouse-grown red romaine lettuce impacts mineral nutrient and soluble sugar concentrations. HortScience, 51(5), 504–509. https://doi.org/10.21273/HORTSCI.51.5.504
Cardoso, D. S. C. P., Sediyama, M. A. N., Poltronieri, Y., Fonseca, M. C. M., & Neves, Y. F. (2017). Effect of concentration and N:K ratio in nutrient solution for hydroponic production of cucumber. Revista Caatinga, 30(4), 818–824. https://doi.org/10.1590/1983-21252017v30n401rc
Collier, G. F., & Tibbitts, T. W. (1982). Tipburn of lettuce. In J. Janick (Ed.), Horticultural reviews (Vol. 4, pp. 49–65). John Wiley & Sons. https://doi.org/10.1002/9781118060773.ch2
Currey, C., Yost, J., & Sporer, R. (2026). Fertilizing specialty leafy greens. Greenhouse Product News. https://gpnmag.com/article/fertilizing-specialty-leafy-greens/
De Pinheiro Henriques, A. R., & Marcelis, L. F. M. (2000). Regulation of growth at steady-state nitrogen nutrition in lettuce (Lactuca sativa L.): Interactive effects of nitrogen and irradiance. Annals of Botany, 86(6), 1073–1080. https://doi.org/10.1006/anbo.2000.1268
de Kreij, C., Voogt, W., & Baas, R. (1999). Nutrient solutions and water quality for soilless cultures (Brochure 196). Research Station for Floriculture and Glasshouse Vegetables, Naaldwijk.
Dorais, M., Papadopoulos, A. P., & Gosselin, A. (2001). Greenhouse tomato fruit quality. Horticultural Reviews, 26, 239–319. https://doi.org/10.1002/9780470650806.ch5
Epstein, E., & Bloom, A. J. (2005). Mineral nutrition of plants: Principles and perspectives (2nd ed.). Sinauer Associates.
Frasetya, B., Taofik, A., & Soleah, M. (2019). The evaluation of various nutrient formulation on the growth of lettuce (Lactuca sativa var. Arista) in hydroponic raft system at tropic region. Journal of Physics: Conference Series, 1402(3), 033025. https://doi.org/10.1088/1742-6596/1402/3/033025
García-Verdugo, H., Enríquez-del Valle, J. R., Campos-Ángeles, G. V., Juárez-Hernández, C., Aragón-Robles, E., Villegas-Aparicio, Y., & Alemán Vargas, V. M. (2012). Nutrient concentration and N/K ratio in the nutrient solution on yield and size of fruit of Capsicum annuum. Acta Horticulturae, 947, 245–248. https://doi.org/10.17660/ActaHortic.2012.947.30
Geraldson, C. M. (1953). Studies on control of blackheart of celery. Proceedings of the Florida State Horticultural Society, 66, 171–176.
Haifa Group. (n.d.). Tomato: Fertilizers & crop guide. Diakses 4 November 2026 dari https://www.haifa-group.com/crop-guide/vegetables/tomato
Hochmuth, G. J., & Hanlon, E. A. (2000). Commercial vegetable fertilization principles (Circular CV009). UF/IFAS Extension, University of Florida.
Ho, L. C., & White, P. J. (2005). A cellular hypothesis for the induction of blossom-end rot in tomato fruit. Annals of Botany, 95(4), 571–581. https://doi.org/10.1093/aob/mci065
Kroggel, M., & Kubota, C. (2018). Hydroponic nutrient solution for optimized greenhouse tomato production (Factsheet HYG-1437). Ohio State University Extension. https://ohioline.osu.edu/factsheet/hyg-1437
Liu, G., Simonne, E. H., Morgan, K. T., Hochmuth, G., Agehara, S., Mylavarapu, R., & Frey, C. (2023). Chapter 2. Fertilizer management for vegetable production in Florida (SP103). In Vegetable production handbook of Florida, 2023–2024. UF/IFAS Extension.
Marschner, P. (Ed.). (2012). Marschner’s mineral nutrition of higher plants (3rd ed.). Academic Press.
Mattson, N. S., & Peters, C. (2014). A recipe for hydroponic success. InsideGrower. Cornell University, Controlled Environment Agriculture Program.
Neocleous, D., & Savvas, D. (2019). The effects of phosphorus supply limitation on photosynthesis, biomass production, nutritional quality, and mineral nutrition in lettuce grown in a recirculating nutrient solution. Scientia Horticulturae, 252, 379–387. https://doi.org/10.1016/j.scienta.2019.04.007
Ollé, M., & Bender, I. (2009). Causes and control of calcium deficiency disorders in vegetables: A review. Journal of Horticultural Science and Biotechnology, 84(6), 577–584. https://doi.org/10.1080/14620316.2009.11512568
Reiners, S., Workman, K., & Ketterings, Q. M. (2023). Nutrient guidelines for commercial vegetable production. Cornell University Nutrient Management Spear Program. http://nmsp.cals.cornell.edu/publications/extension/VegetableGuidelines2023.pdf
Resh, H. M. (2012). Hydroponic food production: A definitive guidebook for the advanced home gardener and the commercial hydroponic grower (7th ed.). CRC Press.
Rietra, R. P. J. J., Heinen, M., Dimkpa, C. O., & Bindraban, P. S. (2017). Effects of nutrient antagonism and synergism on yield and fertilizer use efficiency. Communications in Soil Science and Plant Analysis, 48(16), 1895–1920. https://doi.org/10.1080/00103624.2017.1407429
Roy, R. N., Finck, A., Blair, G. J., & Tandon, H. L. S. (2006). Plant nutrition for food security: A guide for integrated nutrient management (FAO Fertilizer and Plant Nutrition Bulletin No. 16). Food and Agriculture Organization of the United Nations.
Saure, M. C. (2001). Blossom-end rot of tomato (Lycopersicon esculentum Mill.) — A calcium- or a stress-related disorder? Horticultural Reviews, 27, 193–234.
Samarakoon, U., Palmer, J., Ling, P., & Altland, J. E. (2020). Effects of electrical conductivity, pH, and foliar application of calcium chloride on yield and tipburn of Lactuca sativa grown using the nutrient-film technique. HortScience, 55(8), 1265–1272. https://doi.org/10.21273/HORTSCI15070-20
Santamaria, P. (2006). Nitrate in vegetables: Toxicity, content, intake and EC regulation. Journal of the Science of Food and Agriculture, 86(1), 10–17. https://doi.org/10.1002/jsfa.2351
Savvas, D., & Lenz, F. (1994). Influence of salinity on the incidence of the physiological disorder “internal fruit rot” in hydroponically grown eggplants. Angewandte Botanik, 68, 32–35.
Savvas, D., & Lenz, F. (1995). Nährstoffaufnahme von Aubergine (Solanum melongena L.) in Hydrokultur [Penyerapan hara terong dalam hidrokultur]. Gartenbauwissenschaft, 60, 29–33.
Savvas, D., Gianquinto, G., Tüzel, Y., & Gruda, N. (2013). Soilless culture. In W. Baudoin (Ed.), Good agricultural practices for greenhouse vegetable crops: Principles for Mediterranean climate areas (FAO Plant Production and Protection Paper No. 217, pp. 303–354). Food and Agriculture Organization of the United Nations.
Sonneveld, C., & Straver, N. (1994). Nutrient solutions for vegetables and flowers grown in water or substrates (10th ed., Serie Voedingsoplossingen Glastuinbouw No. 8). Proefstation voor Tuinbouw onder Glas te Naaldwijk.
Sonneveld, C., & Voogt, W. (2009). Plant nutrition of greenhouse crops. Springer.
Trejo-Téllez, L. I., & Gómez-Merino, F. C. (2012). Nutrient solutions for hydroponic systems. In T. Asao (Ed.), Hydroponics – A standard methodology for plant biological researches (pp. 1–22). InTechOpen. https://doi.org/10.5772/2215
Urbina-Sánchez, E., Alejo-Santiago, G., Bugarín-Montoya, R., Aburto-González, C. A., & Juárez-Rosete, C. R. (2020). Solución nutritiva adicionada con NH₄⁺ para producción hidropónica de chile huacle (Capsicum annuum L.) [Larutan nutrisi yang ditambah NH₄⁺ untuk produksi hidroponik cabai huacle]. Revista Fitotecnia Mexicana, 43(3), 291–302.
Van der Lugt, G., Holwerda, H. T., Hora, K., Bugter, M., Hardeman, J., & de Vries, P. (2020). Nutrient solutions for greenhouse crops (Version 4; ISBN 9789464021844). Eurofins Agro, Nouryon, SQM, & Yara.
Wenceslau, D. S. L., de Oliveira, D. F., Rabelo, H. O., et al. (2021). Nitrate concentration and nitrate/ammonium ratio on lettuce grown in hydroponics in Southern Amazon. African Journal of Agricultural Research, 17(6), 862–868. https://doi.org/10.5897/JARK2020.15087 (lengkapi daftar penulis dari artikel asli)
Zhu, Y. N., Liu, H. C., Sun, G. W., Li, G., Chen, R. Y., & Song, S. W. (2021). Appropriate NH₄⁺/NO₃⁻ ratio triggers plant growth and nutrient uptake of flowering Chinese cabbage by optimizing the pH value of nutrient solution. Frontiers in Plant Science, 12, 656144. https://doi.org/10.3389/fpls.2021.656144 (koreksi urutan penulis dengan versi asli artikel)
Artikel Bagian 2 dari 4— Rasio Unsur Hara Makro terhadap Nitrogen
Nilai Rasio yang digunakan dalam tulisan ini merupakan hasil sintesa dari literatur dan merupakan panduan bersifat umum yang perlu disesuaikan dengan dengan jenis tanaman, varietas dan kondisi spesifik di lapangan. Selalu rujuk literatur aslinya dan konsultasikan dengan ahli hidroponik anda.
Anda disarankan membaca artikel terkait interaksi unsur hara dan Komposisi Nutrisi Hidroponik sebelum membaca artikel ini