Komposisi Nutrisi Hidroponik
Artikel : Komposisi Nutrisi, Rentang Optimal dan Penyesuaian Nutrisi untuk Sayuran Daun
📄 ARTIKEL BAGIAN 1 DARI 4Artikel ini merupakan tulisan ke-1 dari 4 tulisan yang membahas secara komprehensif tentang komposisi nutrisi hidroponik. Hal-hal yang dibahas mencakup peran ion hara esensial, komposisi nutrisi umum, komposisi nutrisi umum untuk Sayuran Daun serta spesifik antar fase pertumbuhan untuk Sayuran Daun.
Pendahuluan: Peran Spesifik Ion Hara Esensial terhadap Fotosintesis dan Pembentukan Sel Tanaman
The essentiality of an element is established if a deficiency of that element makes it impossible for the plant to complete its life cycle, the deficiency is specific to the element in question, and the element is directly involved in plant metabolism.
1.1 Landasan Konseptual Nutrisi Esensial
Pertumbuhan tanaman sangat bergantung pada ketersediaan 17 unsur hara esensial, yang masing-masing menjalankan fungsi fisiologis spesifik yang tidak dapat digantikan oleh unsur lainnya. Arnon dan Stout (1939) menetapkan tiga kriteria esensialitas unsur hara yaitu (1) kehadiran unsur tersebut mutlak diperlukan agar tanaman mampu menyelesaikan siklus hidupnya, (2) fungsinya tidak dapat digantikan oleh unsur lain, dan (3) unsur tersebut terlibat langsung dalam metabolisme tanaman. Berbeda dengan budidaya di tanah, sistem hidroponik tidak menggunakan medium tanah sebagai sumber hara alami; akibatnya, seluruh kebutuhan mineral tanaman harus dipenuhi melalui larutan nutrisi yang diberikan secara terkontrol (Resh, 2013).
1.2 Peran Ion Hara Makro
1.2.1 Nitrogen (N) — Diserap sebagai NO₃⁻ dan NH₄⁺
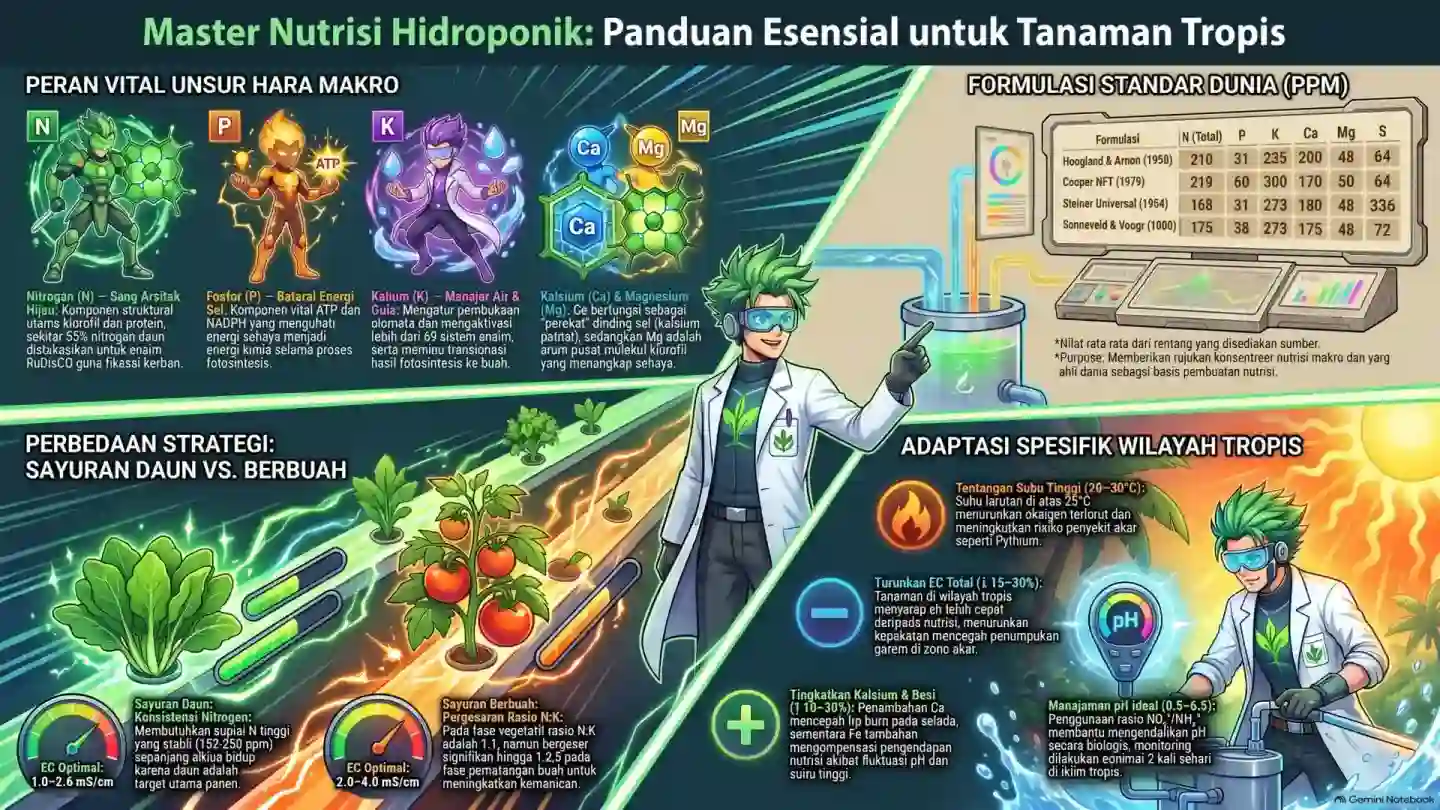
Nitrogen merupakan komponen penyusun utama asam amino, protein, asam nukleat (DNA dan RNA), klorofil, serta berbagai koenzim. Dalam proses fotosintesis, nitrogen menjalankan peran yang sangat penting karena menjadi bagian tak terpisahkan dari molekul klorofil (C₅₅H₇₂O₅N₄Mg): empat atom nitrogen menyusun cincin porfirin yang mengikat atom magnesium di pusat struktur tersebut (Taiz et al., 2015).
Nitrogen juga merupakan komponen penyusun enzim RuBisCO (ribulose-1,5-bisphosphate carboxylase/oxygenase), yaitu enzim paling melimpah di biosfer yang mengkatalisis fiksasi karbon pada Siklus Calvin; menariknya, sekitar 25% nitrogen total daun justru diinvestasikan dalam enzim ini (Makino, 2003). Pada tataran pembentukan sel, keberadaan nitrogen menjadi prasyarat bagi sintesis protein penyusun dinding dan membran sel, serta bagi berlangsungnya pembelahan sel melalui replikasi DNA (Marschner, 2012).
1.2.2 Fosfor (P) — Diserap sebagai H₂PO₄⁻ dan HPO₄²⁻
Fosfor merupakan unsur penyusun esensial adenosin trifosfat (ATP) dan adenosin difosfat (ADP), sepasang molekul yang berfungsi sebagai sistem pembawa dan transfer energi universal dalam sel. Dalam proses fotosintesis, fosfor berperan langsung pada tahap fotofosforilasi, yaitu konversi energi cahaya menjadi energi kimia yang tersimpan dalam bentuk ATP di sepanjang membran tilakoid kloroplas (Taiz et al., 2015).
Fosfor juga menyusun nikotinamida adenin dinukleotida fosfat (NADP⁺/NADPH), koenzim yang berperan sebagai pembawa pereduksi utama pada reaksi Sintesis Calvin. Selain itu, fosfor merupakan bagian integral dari fosfolipid penyusun membran sel, asam nukleat (DNA dan RNA), serta berbagai senyawa gula-fosfat yang berperan sebagai intermediet dalam jalur metabolisme karbohidrat (Marschner, 2012).
1.2.3 Kalium (K) — Diserap sebagai K⁺
Kalium merupakan unsur hara makro dengan tingkat kebutuhan tertinggi kedua setelah nitrogen. Berbeda dengan nitrogen dan fosfor, kalium tidak menyusun komponen struktural molekul organik mana pun, melainkan berperan sebagai aktivator bagi lebih dari 60 sistem enzim, termasuk enzim-enzim yang terlibat dalam fotosintesis dan respirasi (Marschner, 2012).
Dalam proses fotosintesis, kalium berfungsi mengatur pembukaan dan penutupan stomata melalui mekanisme pompa ion K⁺ pada sel penjaga (guard cell): akumulasi K⁺ di dalam sel penjaga menurunkan potensial osmotik, memicu masuknya air secara osmosis, dan pada akhirnya membuka stomata sehingga difusi CO₂ ke dalam daun untuk fiksasi karbon dapat berlangsung (Taiz et al., 2015).
Selain itu, kalium berperan dalam translokasi fotosintat dari daun menuju organ penyimpanan melalui jaringan floem, mengaktivasi enzim ATP-ase pada membran sel, serta memelihara turgor sel yang menjadi prasyarat bagi pembesaran sel (Mengel & Kirkby, 2001)..
1.2.4 Kalsium (Ca) — Diserap sebagai Ca²⁺
Kalsium berperan ganda dalam sel tanaman, baik sebagai unsur struktural maupun regulatorik. Pada fungsi strukturnya, kalsium merupakan komponen utama lamela tengah (middle lamella) dinding sel dalam bentuk kalsium pektat yang berperan sebagai “perekat” antar sel (Marschner, 2012). Dalam proses fotosintesis, ion Ca²⁺ berperan sebagai kofaktor pada kompleks pelepas oksigen (oxygen-evolving complex, OEC) Fotosistem II, di mana kluster Mn₄CaO₅ mengkatalisis oksidasi air menjadi oksigen (2H₂O → O₂ + 4H⁺ + 4e⁻) (Taiz et al., 2015).
Pada fungsi regulatoriknya, ion Ca²⁺ sitosolik bekerja sebagai second messenger dalam transduksi sinyal seluler yang mengendalikan berbagai respons fisiologis, mulai dari pembelahan sel dan gravitropisme hingga respons terhadap berbagai cekaman (White & Broadley, 2003). Karena kalsium bersifat imobil dalam floem, defisiensinya lebih dahulu muncul pada jaringan muda, ditandai dengan nekrosis ujung akar, blossom end rot pada buah tomat, dan tip burn pada tanaman selada (Resh, 2013).
1.2.5 Magnesium (Mg) — Diserap sebagai Mg²⁺
Magnesium menempati posisi sebagai atom pusat dalam molekul klorofil, sehingga keberadaannya secara langsung menentukan kelancaran proses fotosintesis. Sekitar 15–20% magnesium total dalam jaringan tanaman tersimpan dalam bentuk terikat klorofil (Marschner, 2012). Di luar peran fotosintetiknya, magnesium berfungsi sebagai kofaktor bagi lebih dari 300 enzim, antara lain pada reaksi fosforilasi melalui pembentukan kompleks Mg-ATP, pada fiksasi CO₂ melalui aktivasi RuBisCO, serta pada sintesis protein di ribosom (Taiz et al., 2015). Pada tataran pembentukan sel, magnesium diperlukan bagi penggabungan subunit ribosom yang menjadi prasyarat berlangsungnya translasi mRNA menjadi protein (Shaul, 2002).
1.2.6 Sulfur (S) — Diserap sebagai SO₄²⁻
Sulfur merupakan penyusun asam amino sistein dan metionin, sehingga keberadaannya menjadi prasyarat bagi sintesis protein. Unsur ini juga terdapat dalam koenzim A, tiamin pirofosfat, biotin, serta kluster besi-sulfur (iron-sulfur cluster) yang berperan dalam rantai transpor elektron pada proses fotosintesis dan respirasi (Marschner, 2012). Ikatan disulfida (–S–S–) antar residu sistein berperan penting dalam menentukan struktur tiga dimensi protein, termasuk enzim-enzim yang terlibat dalam fotosintesis (Taiz et al., 2015). Lebih lanjut, sulfur merupakan komponen penyusun feredoksin, yaitu protein pembawa elektron pada Fotosistem I (Taiz et al., 2015).
1.3 Peran Ion Hara Mikro
1.4 Ringkasan Peran Ion Hara Esensial
| Unsur Hara | Ion Diserap | Peran dalam Fotosintesis | Peran dalam Pembentukan Sel |
|---|---|---|---|
| Nitrogen (N) | NO₃⁻, NH₄⁺ | Komponen klorofil, RuBisCO | Sintesis protein, DNA, RNA |
| Fosfor (P) | H₂PO₄⁻ | ATP, NADPH dalam fotofosforilasi | Fosfolipid membran, DNA/RNA |
| Kalium (K) | K⁺ | Regulasi stomata, translokasi fotosintat | Turgor sel, pembesaran sel |
| Kalsium (Ca) | Ca²⁺ | Kofaktor OEC Fotosistem II | Lamela tengah, second messenger |
| Magnesium (Mg) | Mg²⁺ | Atom pusat klorofil, aktivasi RuBisCO | Penggabungan ribosom |
| Sulfur (S) | SO₄²⁻ | Kluster Fe-S, feredoksin | Asam amino sistein/metionin |
| Besi (Fe) | Fe²⁺/Fe³⁺ | Sitokrom, kluster Fe-S | Biosintesis klorofil |
| Mangan (Mn) | Mn²⁺ | Kluster Mn₄CaO₅ (fotolisis air) | Aktivator enzim |
| Seng (Zn) | Zn²⁺ | Karbonat anhidrase | Sintesis auksin, stabilitas ribosom |
| Tembaga (Cu) | Cu²⁺ | Plastosianin (transpor elektron) | Lignifikasi dinding sel |
| Boron (B) | H₃BO₃ | Tidak langsung | Struktur dinding sel (RG-II) |
| Molibdenum (Mo) | MoO₄²⁻ | Tidak langsung (melalui N) | Nitrat reduktase |
| Klor (Cl) | Cl⁻ | Kofaktor fotolisis air | Regulasi osmotik |
Komposisi Nutrisi Hidroponik Umum Makro dan Mikro (dalam PPM)
It is the mutual ratios of the ions in the nutrient solution, not their absolute concentrations alone, that determine optimal plant growth.
2.1 Formulasi Rujukan Utama
Beberapa formulasi nutrisi hidroponik telah menjadi standar rujukan dalam penelitian dan praktik komersial. Formulasi-formulasi ini dikembangkan melalui puluhan tahun penelitian dan telah terbukti efektif untuk berbagai jenis tanaman.
Larutan Hoagland dan Arnon merupakan formulasi nutrisi hidroponik yang paling banyak dirujuk dalam literatur ilmiah; formulasi ini dikembangkan di University of California, Berkeley (Hoagland & Arnon, 1950). Pada tahun 1979, Allen Cooper mengembangkan formulasi khusus untuk sistem Nutrient Film Technique (NFT) di Glasshouse Crops Research Institute, Inggris (Cooper, 1979). Steiner kemudian memperkenalkan konsep “larutan nutrisi universal”, yang disusun berdasarkan keseimbangan rasio ionik antar kation dan antar anion yang dinyatakan dalam miliekuivalen (Steiner, 1961, 1984). Selanjutnya, Sonneveld dan Voogt merumuskan formulasi spesifik untuk masing-masing komoditas, yang hingga kini menjadi standar industri hortikultura Belanda (Sonneveld & Voogt, 2009).
2.2 Komposisi Nutrisi Makro Umum
| Unsur Hara | Hoagland & Arnon (1950) | Cooper NFT (1979) | Steiner Universal (1984) | Sonneveld & Voogt (2009) |
|---|---|---|---|---|
| N (Total) | 210 | 200–236 | 168 | 150–200 |
| P | 31 | 60 | 31 | 31–45 |
| K | 235 | 300 | 273 | 200–350 |
| Ca | 200 | 170 | 180 | 150–200 |
| Mg | 48 | 50 | 48 | 30–50 |
| S | 64 | 68 | 336* | 48–96 |
Sumber: Hoagland & Arnon (1950), Cooper (1979), Steiner (1984), Sonneveld & Voogt (2009)
2.3 Komposisi Nutrisi Mikro Umum
| Unsur Hara | Hoagland & Arnon (1950) | Cooper NFT (1979) | Steiner Universal (1984) | Sonneveld & Voogt (2009) |
|---|---|---|---|---|
| Fe | 2–5 | 12 | 2–5 | 0,8–2,0 |
| Mn | 0,5 | 2,0 | 0,5 | 0,4–1,0 |
| Zn | 0,05 | 0,1 | 0,05 | 0,3–0,5 |
| Cu | 0,02 | 0,1 | 0,02 | 0,05–0,1 |
| B | 0,5 | 0,3 | 0,5 | 0,2–0,5 |
| Mo | 0,01 | 0,2 | 0,01 | 0,05 |
2.4 Rentang Ideal, Rentang Toleransi, dan Titik Kritis — Nutrisi Makro
| Unsur | Titik Kritis Bawah | Toleransi Bawah | Rentang Ideal | Toleransi Atas | Titik Kritis Atas |
|---|---|---|---|---|---|
| N (Total) | < 70 | 70–120 | 150–250 | 250–350 | > 400 |
| P | < 10 | 10–20 | 30–60 | 60–100 | > 150 |
| K | < 80 | 80–150 | 200–350 | 350–500 | > 600 |
| Ca | < 60 | 60–120 | 150–250 | 250–350 | > 400 |
| Mg | < 15 | 15–25 | 30–60 | 60–100 | > 150 |
| S | < 16 | 16–32 | 48–96 | 96–200 | > 300 |
2.5 Rentang Ideal, Toleransi, dan Titik Kritis — Nutrisi Mikro
| Unsur | Titik Kritis Bawah | Toleransi Bawah | Rentang Ideal | Toleransi Atas | Titik Kritis Atas |
|---|---|---|---|---|---|
| Fe | < 0,5 | 0,5–1,0 | 1,0–5,0 | 5,0–10,0 | > 20,0 |
| Mn | < 0,1 | 0,1–0,3 | 0,5–2,0 | 2,0–5,0 | > 10,0 |
| Zn | < 0,02 | 0,02–0,05 | 0,05–0,5 | 0,5–2,0 | > 5,0 |
| Cu | < 0,01 | 0,01–0,02 | 0,02–0,1 | 0,1–0,5 | > 1,0 |
| B | < 0,1 | 0,1–0,2 | 0,2–0,5 | 0,5–2,0 | > 5,0 |
| Mo | < 0,005 | 0,005–0,01 | 0,01–0,1 | 0,1–0,5 | > 1,0 |
2.6 Rasio Antar Unsur Hara
Selain konsentrasi absolutnya, keseimbangan rasio antar unsur hara turut menentukan keberhasilan nutrisi dalam budidaya hidroponik. Steiner (1984) menegaskan pentingnya perhitungan rasio ionik dalam satuan miliekuivalen (meq/L) sebagai dasar penyusunan formulasi larutan nutrisi.
Rasio N:K umumnya dijaga pada kisaran 1:1 hingga 1:1,5 selama fase vegetatif, kemudian bergeser menjadi 1:2 hingga 1:2,5 pada fase generatif (Hochmuth, 2001). Sementara itu, rasio Ca:Mg sebaiknya dipertahankan sekitar 3:1 hingga 4:1 (dalam miliekuivalen) untuk mencegah terjadinya antagonisme dalam penyerapan unsur (Sonneveld & Voogt, 2009).
Komposisi Nutrisi Antar Fase untuk Tanaman Sayuran Daun
Leafy vegetables require consistent nitrogen supply throughout their growth cycle, as the harvested organ — the leaf — is primarily a nitrogen sink for protein and chlorophyll synthesis.
3.1 Karakteristik Kebutuhan Nutrisi Sayuran Daun
Sayuran daun — antara lain selada (Lactuca sativa), sawi (Brassica juncea), pakcoy (Brassica rapa subsp. chinensis), kale (Brassica oleracea var. sabellica), seledri (Apium graveolens), dan bawang daun (Allium fistulosum) — memiliki kebutuhan nutrisi yang berbeda dari sayuran buah. Umumnya, sayuran daun memerlukan pasokan nitrogen yang relatif tinggi dan terus-menerus sepanjang siklus hidupnya, sebab bagian yang dipanen justru merupakan massa vegetatif yang pertumbuhannya bergantung langsung pada ketersediaan nitrogen (Resh, 2013). Selain itu, konsentrasi EC yang disarankan untuk sayuran daun umumnya lebih rendah daripada sayuran buah, yaitu berkisar antara 1,0–2,5 mS/cm (Sonneveld & Voogt, 2009).
3.2 Fase Pertumbuhan Sayuran Daun
Akar & kotiledon
Daun sejati & kanopi
Pembesaran & akumulasi biomassa
HSS = Hari Setelah Semai. Durasi bervariasi antar spesies (Resh, 2013; Savvas et al., 2013).
3.3 Komposisi Nutrisi Makro & Mikro Antar Fase — Sayuran Daun Umum
| Unsur Hara | Fase Semai | Fase Veg. Awal | Fase Veg. Akhir / Panen |
|---|---|---|---|
| N (Total) | 80–120 | 150–200 | 180–250 |
| P | 20–30 | 30–50 | 30–50 |
| K | 80–120 | 150–250 | 200–300 |
| Ca | 60–100 | 120–180 | 150–220 |
| Mg | 20–30 | 30–50 | 40–60 |
| S | 20–32 | 32–64 | 48–80 |
| EC (mS/cm) | 0,5–0,8 | 1,0–1,6 | 1,4–2,2 |
| Unsur Hara | Fase Semai | Fase Veg. Awal | Fase Veg. Akhir / Panen |
|---|---|---|---|
| Fe | 1,0–2,0 | 2,0–4,0 | 2,0–5,0 |
| Mn | 0,3–0,5 | 0,5–1,0 | 0,5–1,5 |
| Zn | 0,03–0,05 | 0,05–0,3 | 0,1–0,5 |
| Cu | 0,01–0,02 | 0,02–0,05 | 0,02–0,1 |
| B | 0,1–0,2 | 0,2–0,4 | 0,3–0,5 |
| Mo | 0,005–0,01 | 0,01–0,05 | 0,02–0,05 |
3.4 Komposisi Nutrisi Spesifik Per Komoditas
3.4.1 Selada (Lactuca sativa)
Di antara berbagai komoditas, selada (Lactuca sativa) merupakan tanaman yang paling banyak diteliti dalam sistem hidroponik. Selada tergolong sensitif terhadap kenaikan EC, sehingga kisaran optimumnya perlu dijaga pada 1,0–1,8 mS/cm dengan pH 5,5–6,5 (Resh, 2013). Di sisi lain, pasokan nitrogen yang berlebihan (>250 ppm) berisiko memicu akumulasi nitrat pada jaringan daun melebihi ambang aman (Santamaria, 2006; Maynard et al., 1976).
| Unsur | Semai (EC 0,5–0,8) | Veg. Awal (EC 1,0–1,4) | Veg. Akhir (EC 1,2–1,8) |
|---|---|---|---|
| N | 80–100 | 130–170 | 150–200 |
| P | 15–25 | 30–45 | 30–50 |
| K | 80–100 | 130–200 | 180–250 |
| Ca | 60–80 | 100–160 | 140–200 |
| Mg | 15–25 | 25–40 | 30–50 |
| S | 16–24 | 24–48 | 32–64 |
| Fe | 1,0–2,0 | 2,0–3,0 | 2,0–4,0 |
| Mn | 0,3–0,5 | 0,5–0,8 | 0,5–1,0 |
| Zn | 0,03–0,05 | 0,05–0,2 | 0,1–0,3 |
| Cu | 0,01–0,02 | 0,02–0,05 | 0,02–0,05 |
| B | 0,1–0,2 | 0,2–0,3 | 0,3–0,5 |
| Mo | 0,005–0,01 | 0,01–0,03 | 0,01–0,05 |
3.4.2 Sawi (Brassica juncea) dan Pakcoy (Brassica rapa subsp. chinensis)
Sawi dan pakcoi, yang sama-sama berasal dari famili Brassicaceae, memerlukan pasokan sulfur relatif lebih tinggi dibandingkan selada karena adanya biosintesis glukosinolat yaitu senyawa sekunder yang kaya akan sulfur (Marschner, 2012). Kisaran EC optimal untuk kedua komoditas ini berada pada 1,5–2,5 mS/cm (Resh, 2013).
| Unsur | Semai (EC 0,5–0,8) | Veg. Awal (EC 1,2–1,8) | Veg. Akhir (EC 1,5–2,5) |
|---|---|---|---|
| N | 90–120 | 150–200 | 180–250 |
| P | 20–30 | 30–50 | 35–55 |
| K | 90–120 | 160–230 | 200–300 |
| Ca | 70–100 | 120–180 | 150–220 |
| Mg | 20–30 | 30–45 | 35–55 |
| S | 24–40 | 40–70 | 50–96 |
| Fe | 1,0–2,0 | 2,0–4,0 | 2,5–5,0 |
| Mn | 0,3–0,5 | 0,5–1,0 | 0,5–1,5 |
| Zn | 0,03–0,05 | 0,05–0,3 | 0,1–0,5 |
| Cu | 0,01–0,02 | 0,02–0,05 | 0,02–0,1 |
| B | 0,1–0,2 | 0,2–0,4 | 0,3–0,5 |
| Mo | 0,005–0,01 | 0,01–0,05 | 0,02–0,05 |
3.4.3 Kale (Brassica oleracea var. sabellica)
Kale memiliki profil kebutuhan nutrisi yang serupa dengan sawi, tetapi cenderung membutuhkan EC yang lebih tinggi yaitu sekitar 1,8–2,1 mS/cm pada fase produksi. Kale juga memerlukan pasokan kalsium yang memadai, mengingat kejadian tip burn pada sayuran daun sangat ditentukan oleh kelancaran serapan dan transport Ca menuju jaringan daun muda (Yang et al., 2024; Samarakoon et al., 2020).
| Unsur | Semai (EC 0,5–0,8) | Veg. Awal (EC 1,4–2,0) | Veg. Akhir (EC 1,8–2,8) |
|---|---|---|---|
| N | 100–130 | 160–220 | 200–270 |
| P | 20–30 | 30–50 | 35–55 |
| K | 100–130 | 170–250 | 220–320 |
| Ca | 80–110 | 140–200 | 170–250 |
| Mg | 20–30 | 30–50 | 40–60 |
| S | 30–48 | 48–80 | 64–110 |
| Fe | 1,0–2,0 | 2,5–4,0 | 3,0–5,0 |
| Mn | 0,3–0,5 | 0,5–1,0 | 0,5–2,0 |
| Zn | 0,03–0,05 | 0,05–0,3 | 0,1–0,5 |
| Cu | 0,01–0,02 | 0,02–0,05 | 0,03–0,1 |
| B | 0,1–0,2 | 0,2–0,4 | 0,3–0,5 |
| Mo | 0,005–0,01 | 0,01–0,05 | 0,02–0,05 |
3.4.4 Seledri (Apium graveolens)
Kebutuhan seledri akan kalsium dan boron relatif lebih tinggi daripada sayuran daun lainnya, karena kedua unsur tersebut berperan mencegah terjadinya blackheart, yaitu gangguan nekrosis internal pada batang (Resh, 2013). Kisaran EC optimal untuk seledri adalah 1,8–2,5 mS/cm dan dengan siklus tanam yang juga lebih panjang, yaitu 70–120(Resh, 2013).
| Unsur | Semai (EC 0,5–1,0) | Veg. Awal (EC 1,5–2,0) | Veg. Akhir (EC 1,8–2,5) |
|---|---|---|---|
| N | 100–130 | 170–220 | 200–270 |
| P | 20–30 | 30–50 | 35–55 |
| K | 100–140 | 180–270 | 230–350 |
| Ca | 80–120 | 150–220 | 180–260 |
| Mg | 20–35 | 35–50 | 40–60 |
| S | 24–40 | 40–64 | 48–80 |
| Fe | 1,0–2,0 | 2,5–4,0 | 3,0–5,0 |
| Mn | 0,3–0,5 | 0,5–1,0 | 0,5–1,5 |
| B | 0,2–0,3 | 0,3–0,5 | 0,4–0,7 |
3.4.5 Bawang Daun (Allium fistulosum)
Bawang daun (Allium fistulosum) memiliki sistem perakaran yang relatif dangkal, sehingga ketersediaan air dan hara pada zona rhizosphere perlu dijaga ketat. Kisaran EC optimal untuk komoditas ini adalah 1,4–2,0 mS/cm (Resh, 2013). Dibandingkan sayuran daun lainnya, bawang daun memerlukan pasokan sulfur yang relatif tinggi karena sulfur merupakan komponen penyusun prekursor rasa khas genus Allium, yaitu senyawa S-alk(en)il-L-sistein sulfoxida seperti isoalliin dan metiin (Jones et al., 2004).
| Unsur | Semai (EC 0,5–0,8) | Veg. Awal (EC 1,0–1,5) | Veg. Akhir (EC 1,4–2,0) |
|---|---|---|---|
| N | 80–110 | 130–180 | 160–220 |
| P | 15–25 | 25–40 | 30–50 |
| K | 80–120 | 140–220 | 180–280 |
| Ca | 60–90 | 100–160 | 130–200 |
| Mg | 15–25 | 25–40 | 30–50 |
| S | 30–48 | 48–80 | 64–100 |
| Fe | 1,0–2,0 | 2,0–3,5 | 2,5–4,5 |
| Mn | 0,3–0,5 | 0,5–1,0 | 0,5–1,5 |
| B | 0,1–0,2 | 0,2–0,3 | 0,2–0,5 |
3.5 Rentang Ideal, Toleransi, dan Titik Kritis — Sayuran Daun
| Unsur | Titik Kritis Bawah | Toleransi Bawah | Rentang Ideal | Toleransi Atas | Titik Kritis Atas |
|---|---|---|---|---|---|
| N | < 60 | 60–100 | 130–250 | 250–320 | > 350 |
| P | < 8 | 8–15 | 25–55 | 55–90 | > 120 |
| K | < 60 | 60–100 | 140–300 | 300–450 | > 550 |
| Ca | < 40 | 40–80 | 100–250 | 250–350 | > 400 |
| Mg | < 10 | 10–20 | 25–60 | 60–90 | > 130 |
| S | < 12 | 12–24 | 32–96 | 96–180 | > 250 |
| Unsur | Titik Kritis Bawah | Toleransi Bawah | Rentang Ideal | Toleransi Atas | Titik Kritis Atas |
|---|---|---|---|---|---|
| Fe | < 0,3 | 0,3–0,8 | 1,0–5,0 | 5,0–10,0 | > 15,0 |
| Mn | < 0,08 | 0,08–0,2 | 0,3–1,5 | 1,5–4,0 | > 8,0 |
| Zn | < 0,02 | 0,02–0,04 | 0,05–0,5 | 0,5–2,0 | > 4,0 |
| Cu | < 0,005 | 0,005–0,01 | 0,02–0,1 | 0,1–0,4 | > 0,8 |
| B | < 0,05 | 0,05–0,1 | 0,2–0,5 | 0,5–1,5 | > 3,0 |
| Mo | < 0,003 | 0,003–0,008 | 0,01–0,05 | 0,05–0,3 | > 0,8 |
Artikel Bagian 1 dari 4— Komposisi Nutrisi Hidroponik
Nilai Komposisi Nutrsi (ppm) yang digunakan dalam tulisan ini merupakan hasil sintesa dari literatur dan merupakan panduan bersifat umum yang perlu disesuaikan dengan dengan jenis tanaman, varietas dan kondisi spesifik di lapangan. Selalu rujuk literatur aslinya dan konsultasikan dengan ahli hidroponik anda.
Anda disarankan membaca artikel terkait interaksi unsur hara sebelum mempelajari artikel ini
Kok ternyata rumit banget ya….