Rasio Unsur Hara Makro terhadap Nitrogen dalam Larutan Nutrisi Hidroponik
Tinjauan mengenai keseimbangan P, K, Ca, Mg, dan S terhadap Nitrogen pada Sistem budidaya hidroponik.
Artikel 3 dari 4 : Bagian ini membahas Penyesuaian Rasio untuk Wilayah Tropis, Konsekuensi Ketidakseimbangan Rasio, Temuan Spesifik Nilai Rasio dari Penelitian dan Faktor-Faktor yang Mempengaruhi Nilai Rasio).
Catatan Metodologis
Hasil penelusuran literatur menunjukkan belum ditemukannya satu pun himpunan data (dataset) yang secara eksplisit menetapkan rasio P, K, Ca, Mg, dan S terhadap N untuk budidaya hidroponik di wilayah tropis basah pada seluruh fase pertumbuhan. Bagian 5-8 ini karenanya disusun sebagai sintesis. Nilai dasar diperoleh dari Bagian 2–4 (di artikel 1 dan artikel 2), kemudian disesuaikan berdasarkan faktor lingkungan yang telah didokumentasikan pada sumber yang dirujuk, meliputi suhu, transpirasi, EC, dan kelembapan. Angka-angka yang bertanda rekomendasi kerja belum diuji sebagai satu perlakuan di lapangan tropis; oleh karena itu, penerapannya perlu dikonfirmasi melalui analisis larutan dan analisis tanaman yang dilakukan di lokasi budidaya.
Bagian Pertama
Penyesuaian Rasio untuk Wilayah Tropis
5.1 Prinsip Penyesuaian pada Iklim Panas dan Lembap
Wilayah tropis dataran rendah umumnya memiliki intensitas radiasi yang tinggi, suhu udara dan suhu larutan hara yang tinggi, defisit tekanan uap (vapour pressure deficit, VPD) pada siang hari yang tinggi, serta kelembapan udara pada malam hari yang tinggi. Kondisi tersebut memengaruhi hubungan antara penyerapan air dan penyerapan hara oleh tanaman. Pada suhu dan VPD yang tinggi, laju transpirasi cenderung meningkat lebih besar daripada laju penyerapan hara. Oleh karena itu, konsentrasi hara dan daya hantar listrik (electrical conductivity, EC) larutan perlu diturunkan secara selektif untuk mencegah akumulasi garam dan tekanan osmotik berlebih di zona perakaran (Bugbee, 2004; Langenfeld et al., 2022).
Sebaliknya, pada kelembapan tinggi dengan VPD rendah, transpirasi menurun sehingga pergerakan kalsium (Ca) melalui xilem ke organ tanaman yang bertranspirasi menjadi terbatas. Dalam kondisi tersebut, peningkatan konsentrasi hara secara keseluruhan bukanlah kompensasi yang tepat karena transportasi Ca terutama mengikuti aliran transpirasi, bukan semata-mata gradien konsentrasi larutan (Dorais et al., 2001; Olle & Bender, 2009). Dorais et al. (2001) menegaskan bahwa nisbah penyerapan hara terhadap penyerapan air berubah mengikuti kondisi iklim mikro dan menyarankan penyesuaian konsentrasi larutan secara diurnal berdasarkan VPD, termasuk penurunan EC pada periode transpirasi yang tinggi.
Dua kondisi iklim, dua arah penyesuaian yang berbeda
Kaidah operasional yang lebih tepat, bukanlah meningkatkan seluruh konsentrasi hara secara serentak, melainkan mempertahankan keseimbangan rasio antarhara sambil menyesuaikan EC dan strategi irigasi. Praktik yang dapat diterapkan meliputi penurunan EC pada siang hari yang panas, peningkatan frekuensi irigasi, serta pengaturan proporsi kalsium (Ca) dan kalium (K) dalam bentuk rasio antarhara, bukan hanya melalui penambahan konsentrasi absolut (Dorais et al., 2001; Langenfeld et al., 2022). Pada sistem hidroponik tertutup, penggunaan air dengan kandungan ion bikarbonat (HCO3-) dan natrium (Na+) yang tinggi juga memerlukan koreksi tersendiri. Bikarbonat dapat meningkatkan pH dan menuntut netralisasi menggunakan asam, sedangkan Na+ cenderung terakumulasi dalam larutan yang disirkulasi ulang sehingga meningkatkan EC tanpa memberikan manfaat hara yang sepadan (Sonneveld & Voogt, 2009; Van der Lugt, 2017).
5.2 Sayuran Daun: Rasio dan EC per Fase
| Fase | Umur (HST, indikatif) | N (mg·L⁻¹) | P/N | K/N | Ca/N | Mg/N | S/N | EC (mS·cm⁻¹) | pH | Catatan penyesuaian tropis |
|---|---|---|---|---|---|---|---|---|---|---|
| Semai/persemaian | 0–7 | 50–100 | 0,20–0,30 | 1,0–1,2 | 0,55–0,70 | 0,15–0,25 | 0,20–0,40 | 0,5–0,8 | 5,8–6,2 | Semai : larutan persemaian disiapkan pada ¼–½ kekuatan; Naungan 50% dapat diterapkan pada radiasi berlebih; suhu larutan hendaknya tidak melebihi 30 °C. |
| Vegetatif awal | 7–14 | 100–150 | 0,15–0,25 | 1,1–1,3 | 0,60–0,70 | 0,10–0,25 | 0,25–0,45 | 0,8–1,2 | 5,8–6,2 | Vegetatif awal : Rasio Ca:N dijaga di atas 0,55 untuk mengurangi risiko tipburn dini |
| Vegetatif aktif | 14–28 | 150–200 | 0,15–0,25 | 1,2–1,5 | 0,60–0,75 | 0,14–0,20 | 0,25–0,45 | 1,4–2,0 | 5,6–6,2 | Vegetatif aktif : EC dapat diturunkan 0,2–0,4 mS·cm⁻¹ pada siang bersuhu di atas 32 °C dan aerasi ditingkatkan. |
| Pra-panen/pemadatan | 28–panen | 150–200 | 0,15–0,25 | 1,4–1,6 | 0,70–0,85 | 0,15–0,20 | 0,25–0,45 | 1,6–2,2 | 5,6–6,0 | Prapanen : Peningkatan dilakukan pada proporsi Ca, bukan N; rasio NO3-:NH4+ dijaga minimal 80:20. |
Geser tabel ke samping untuk melihat semua kolom →
Pergeseran rasio K/N dan Ca/N sepanjang fase sayuran daun
Kerangka penyesuaian larutan berdasarkan fase pertumbuhan mengacu pada prinsip koreksi stadia tanaman yang dipaparkan dalam panduan formulasi larutan Van der Lugt (2017). Arah perubahan rasio P, K, Ca, Mg, dan S terhadap N mengikuti kerangka formulasi Sonneveld dan Straver (1994) serta Mattson dan Peters (2014), kemudian disesuaikan dengan kebutuhan sayuran daun pada kondisi dataran rendah tropis.
Rentang EC dan pH pada Tabel 5.1 mengacu pada prinsip umum manajemen larutan hidroponik yang dikemukakan oleh Bugbee (2004) serta Trejo-Téllez dan Gómez-Merino (2012). Pada kondisi suhu udara dan larutan yang tinggi, EC dianjurkan untuk diturunkan guna mengurangi tekanan osmotik di zona perakaran dan mempertahankan keseimbangan antara serapan air dan serapan hara (Bugbee, 2004).
Rentang pH 5,6–6,2 berada dalam kisaran optimum bagi sebagian besar tanaman hidroponik. Anderson et al. (2017) juga menunjukkan bahwa pH 5,8 menghasilkan pertumbuhan biomassa selada butterhead yang lebih tinggi dibandingkan pH 7,0, sehingga penggunaan larutan yang sedikit asam dapat dipertahankan.
5.3 Sayuran berbuah: rasio dan EC per fase
| Fase | Indikator | N (mg·L⁻¹) | P/N | K/N | Ca/N | Mg/N | S/N | EC (mS·cm⁻¹) | pH | Catatan penyesuaian tropis |
|---|---|---|---|---|---|---|---|---|---|---|
| Vegetatif awal | 0–3 minggu setelah tanam | 150–200 | 0,20–0,25 | 1,1–1,4 | 0,70–1,00 | 0,22–0,30 | 0,15–0,40 | 1,6–2,2 | 5,6–6,2 | Ca/N tinggi untuk membangun kerangka jaringan; pada suhu tinggi turunkan EC, bukan Ca |
| Pembungaan | kuncup–anthesis | 180–230 | 0,20–0,25 | 1,3–1,6 | 0,75–1,00 | 0,22–0,30 | 0,20–0,45 | 1,8–2,4 | 5,6–6,0 | Pertahankan Ca/N; hindari penurunan Ca untuk menaikkan K secara mendadak |
| Pembuahan awal | 0–20 hari setelah antesis | 180–230 | 0,20–0,25 | 1,6–2,0 | 0,80–1,00 | 0,25–0,33 | 0,25–0,50 | 2,0–2,6 | 5,6–6,0 | Fase paling rentan BER dan busuk ujung buah; jaga K:Ca ≤ 2,5 |
| Pembesaran buah | 20–45 hari | 180–220 | 0,18–0,22 | 1,8–2,4 | 0,80–1,10 | 0,28–0,35 | 0,25–0,55 | 2,0–2,8 | 5,6–6,0 | K dinaikkan bertahap; pemantauan Ca daun dan Ca larut air buah |
| Panen / pemeliharaan | > 45 hari | 170–210 | 0,18–0,22 | 1,8–2,6 | 0,90–1,20 | 0,28–0,35 | 0,25–0,60 | 2,2–3,0 | 5,6–6,0 | EC lebih tinggi memperbaiki kualitas (padatan terlarut) tetapi menurunkan bobot buah; pantau drainase |
Dasar: pola kenaikan K:N mengikuti Haifa (2018), Kroggel & Kubota (2018), dan Cardoso dkk. (2017); arah koreksi stadia mengikuti van der Lugt (2017); batas EC kualitas–hasil mengikuti Dorais dkk. (2001). Nilai rasio merupakan sintesis penulis untuk kondisi tropis dan bersifat titik awal yang perlu dikalibrasi dengan data lokal.
Geser tabel ke samping untuk melihat semua kolom →
Rentang rasio & EC aktual per fase — klik untuk berpindah
Fase paling rentan. Jaga K:Ca ≤ 2,5 — fase paling rentan BER dan busuk ujung buah.
Kompromi kualitas–bobot. EC lebih tinggi memperbaiki kualitas (padatan terlarut) tetapi menurunkan bobot buah; pantau drainase.
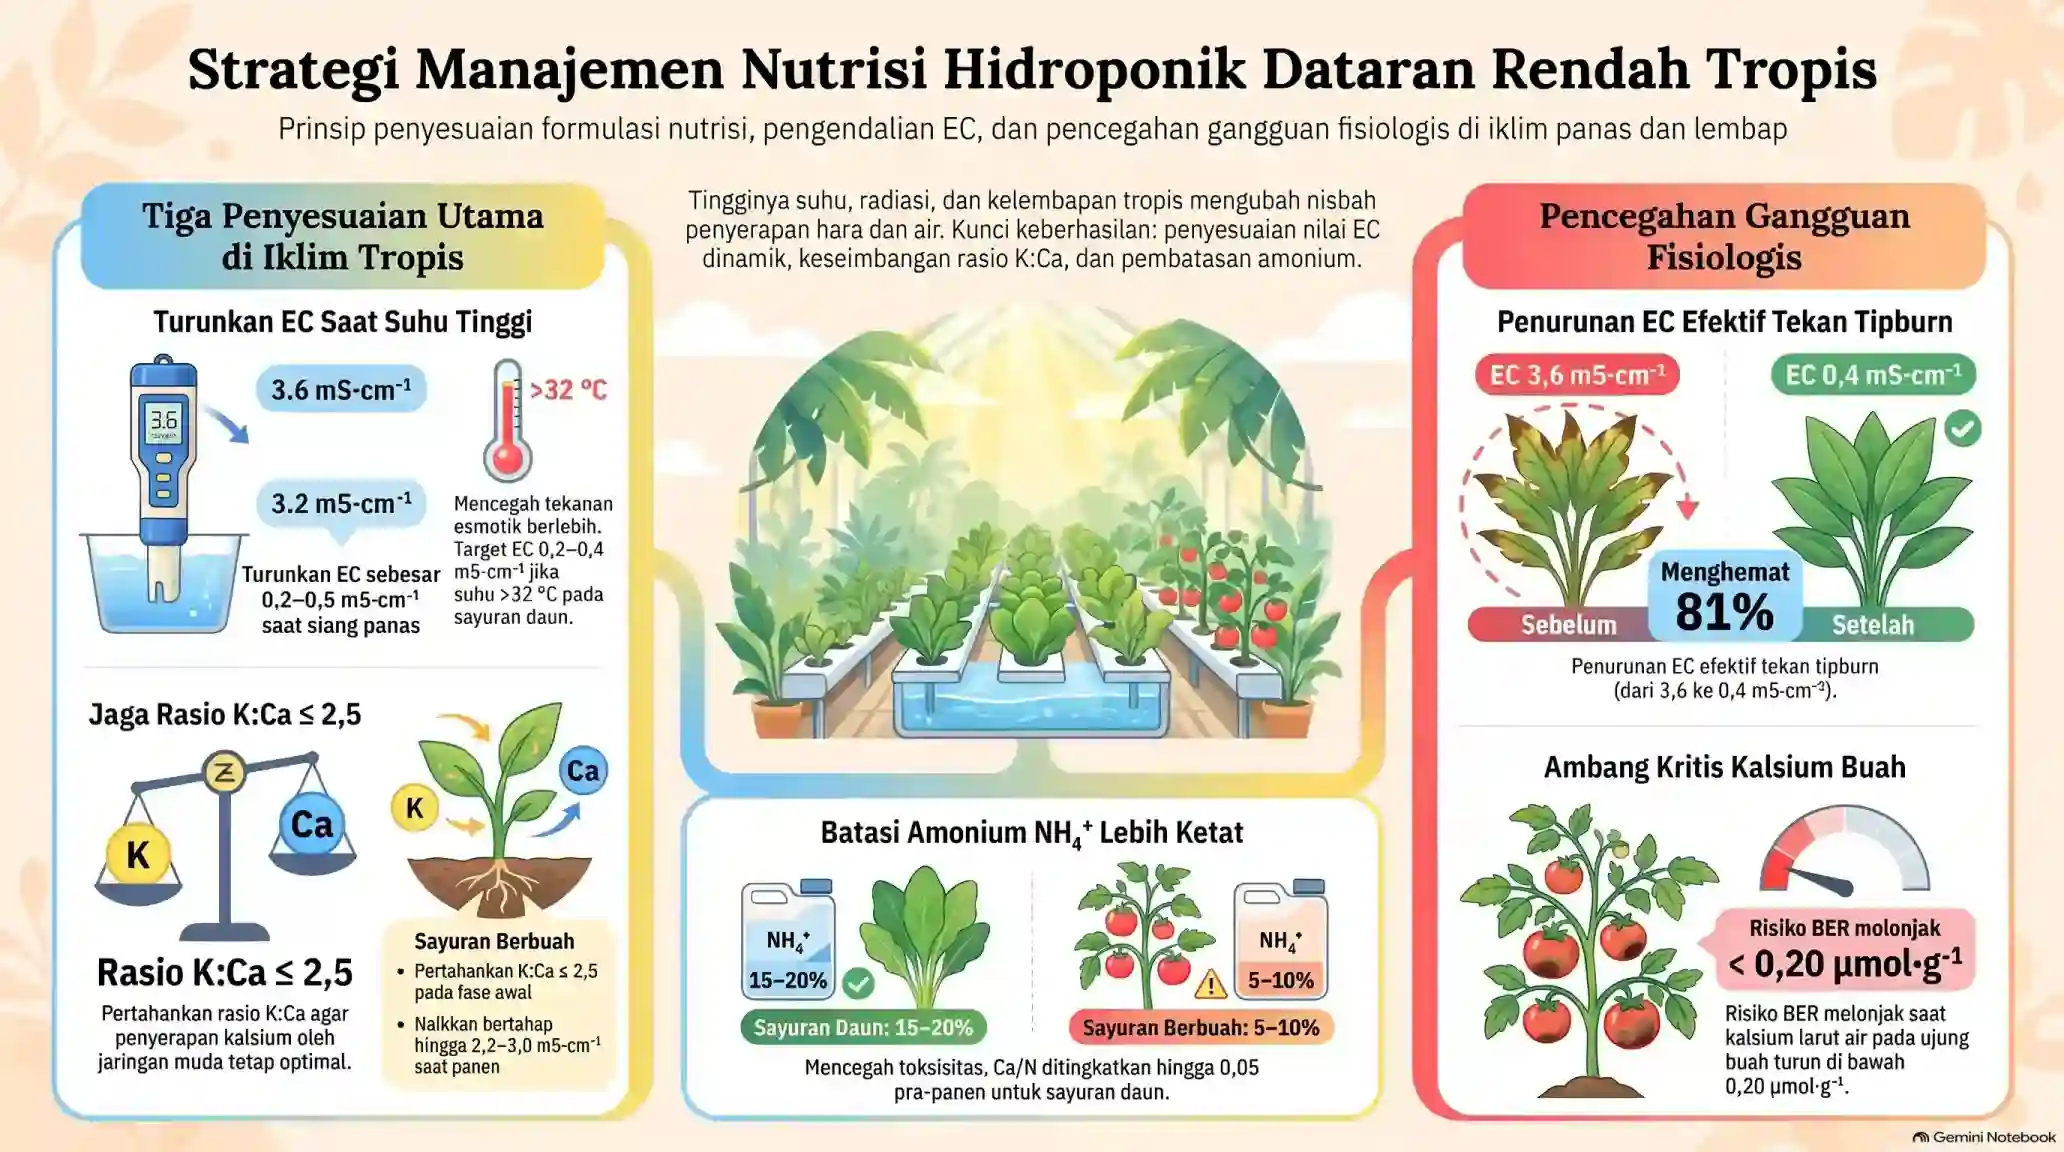
5.4 Tiga Penyesuaian yang Paling Berpengaruh di Dataran Rendah Tropis
Menurunkan EC, bukan mengubah rasio secara drastis
Pada suhu dan VPD tinggi, transpirasi meningkat lebih cepat daripada serapan hara, sehingga EC larutan yang sama dapat menghasilkan tekanan osmotik dan konsentrasi ion efektif yang lebih tinggi di zona akar.
Turunkan EC 0,2–0,5 mS·cm⁻¹ pada periode panas · naikkan frekuensi irigasi · pantau volume & komposisi drainaseMenjaga rasio Ca:N di bagian atas rentang, tanpa Ca berlebihan
Pada suhu tinggi, laju pertumbuhan dan kebutuhan Ca jaringan muda meningkat; namun peningkatan Ca larutan tidak selalu memperbaiki status Ca jaringan bila hambatannya ada pada transportasi xilem.
Jaga rasio K:Ca ≤ 2,5 · dukung transpirasi merata · bukan kadar Ca absolut yang tinggiMembatasi NH₄⁺ lebih ketat
Suhu larutan tinggi dan fluktuasi pH memperbesar risiko penurunan pH rizosfer akibat serapan NH₄⁺, dan dapat memperburuk kompetisi terhadap serapan Ca dan Mg.
Proporsi NH₄⁺: 5–10% dari total N (buah) · 15–20% (daun) · lebih aman daripada 25–30%Pertama, menurunkan EC, bukan mengubah rasio secara drastis. Pada suhu dan VPD tinggi, transpirasi meningkat lebih cepat daripada serapan hara, sehingga EC larutan yang sama dapat menghasilkan tekanan osmotik dan konsentrasi ion efektif yang lebih tinggi di zona akar. Praktik yang sesuai adalah menurunkan EC target sebesar 0,2–0,5 mS·cm⁻¹ pada periode panas, meningkatkan frekuensi irigasi, serta memantau volume dan komposisi drainase (Dorais et al., 2001; Langenfeld et al., 2022; Van der Lugt, 2017).
Kedua, menjaga rasio Ca:N pada bagian atas rentang yang direkomendasikan tanpa menaikkan Ca secara berlebihan. Pada suhu tinggi, laju pertumbuhan meningkat dan kebutuhan Ca pada jaringan muda meningkat; namun, peningkatan Ca dalam larutan tidak selalu memperbaiki status Ca jaringan apabila hambatan utamanya terletak pada transportasi melalui xilem. Oleh karena itu, yang perlu dijaga adalah rasio K:Ca yang tidak terlalu tinggi, misalnya ≤ 2,5, disertai lingkungan yang mendukung transpirasi merata, bukan kadar Ca absolut yang tinggi (Huett, 1994; Olle & Bender, 2009).
Ketiga, membatasi NH₄⁺ lebih ketat. Suhu larutan yang tinggi dan fluktuasi pH memperbesar risiko penurunan pH rizosfer akibat serapan NH₄⁺; kondisi tersebut juga dapat memperburuk kompetisi terhadap serapan Ca dan Mg. Untuk kondisi tropis, proporsi NH₄⁺ sebesar 5–10% dari total N pada sayuran berbuah dan 15–20% pada sayuran daun merupakan titik awal yang lebih aman daripada proporsi 25–30%. Rekomendasi ini konsisten dengan temuan Wenceslau et al. (2021) bahwa sekitar 23% N sebagai NH₄⁺ merupakan batas atas untuk selada tipe Iceberg, sedangkan proporsi yang lebih tinggi menurunkan produktivitas dan menimbulkan gejala toksisitas (Van der Lugt, 2017; Wenceslau et al., 2021; Zhu et al., 2020)
Zona aman proporsi NH₄⁺ terhadap total N
5–10% NH₄⁺
Titik awal yang lebih aman untuk tomat, cabai, dan terung.
15–20% NH₄⁺
Batas atas praktis; ±23% N sebagai NH₄⁺ merupakan batas atas untuk selada tipe Iceberg (Wenceslau et al., 2021).
25–30% NH₄⁺
Menurunkan produktivitas dan menimbulkan gejala toksisitas; pH rizosfer turun, kompetisi Ca & Mg meningkat.
Bagian Kedua
Konsekuensi Ketidakseimbangan Rasio
Rasio hara terhadap N yang dianjurkan pada Bagian 5 berfungsi sebagai titik kerja optimal dalam formulasi larutan hara. Penyimpangan dari rasio tersebut, baik berupa kelebihan maupun kekurangan N secara relatif terhadap hara lain, dapat menimbulkan konsekuensi fisiologis yang teramati pada pertumbuhan, hasil, dan kualitas produk. Bagian ini merangkum bukti empiris mengenai konsekuensi tersebut dalam dua kondisi yang berlawanan, yaitu N berlebih secara relatif (Subbab 6.1) dan N defisien secara relatif (Subbab 6.2). Selanjutnya, bagian ini menguraikan dua gangguan fisiologis yang paling menentukan kualitas produksi sayuran tropis, yaitu tipburn pada sayuran daun (Subbab 6.3) serta blossom end rot pada sayuran berbuah (Subbab 6.4 dan 6.5)
Pada kedua gangguan tersebut, ketidakseimbangan antara N, Ca, dan K berinteraksi dengan kondisi iklim mikro serta laju pertumbuhan tanaman. Kelebihan K secara relatif dapat menekan serapan Ca melalui kompetisi antarkation, sedangkan N yang berlebih mendorong pertumbuhan vegetatif dan meningkatkan transpirasi daun; akibatnya, Ca cenderung dialokasikan lebih banyak ke daun dan tunas muda yang bertranspirasi tinggi dibandingkan ke buah yang sedang berkembang (Rietra et al., 2017; Ho & White, 2005).
Sebaliknya, kelembapan udara yang tinggi menurunkan laju transpirasi dan dengan demikian membatasi aliran massal Ca melalui xilem menuju jaringan muda yang bertranspirasi rendah, termasuk daun dalam dan buah. Pada kondisi tersebut, kadar Ca dalam larutan yang memadai tidak selalu menjamin Ca mencapai jaringan distal buah atau daun muda (Ho & White, 2005; Olle & Bender, 2009).
6.1 N Terlalu Tinggi Dibandingkan Hara Lain
| Kelebihan relatif N | Mekanisme | Akibat pada pertumbuhan dan hasil | Rujukan |
|---|---|---|---|
| N tinggi, K rendah (K/N < 0,8) | Vigor vegetatif berlebih; fotosintat lebih banyak dialokasikan ke organ vegetatif | Pertumbuhan vegetatif berlebihan, pembungaan dan pembuahan terhambat, pengisian buah serta kualitas produk menurun | Sonneveld & Voogt (2009); Van der Lugt (2017) |
| N tinggi, Ca rendah (Ca/N < 0,45; K:Ca > 3) | Kompetisi kation serta keterbatasan pasokan Ca ke jaringan distal buah | Blossom end rot pada tomat; gangguan Ca pada buah cabai dan terung; penurunan hasil terpasarkan | Ho & White (2005); Rietra et al. (2017) |
| N tinggi, Ca relatif rendah pada sayuran daun | Laju pertumbuhan daun muda melebihi kapasitas pasokan dan distribusi Ca melalui xilem | Tipburn pada selada dan pakcoy; nekrosis pada tepi daun muda; penurunan mutu visual dan hasil terpasarkan | Huett (1994); Olle & Bender (2009) |
| N tinggi, Mg relatif rendah | Kompetisi antarkation serta efek pengenceran akibat pertumbuhan vegetatif cepat | Klorosis interveinal pada daun tengah hingga bawah; penurunan kapasitas fotosintesis dan produksi fotosintat | Rietra et al. (2017); Sonneveld & Voogt (2009) |
| N tinggi, S relatif rendah | Kebutuhan S untuk sintesis asam amino dan protein tidak terpenuhi | Klorosis yang lebih menonjol pada daun muda; efisiensi penggunaan N dan potensi hasil menurun | Teagasc (2020) |
| N tinggi dalam bentuk NO3- pada sayuran daun | Akumulasi nitrat dalam vakuola sel daun | Kadar NO3- daun meningkat dan berpotensi melampaui ambang regulasi; kualitas serta keamanan pangan menurun | Urlić et al. (2017) |
Geser tabel ke samping untuk melihat semua kolom →
Klaim bahwa kelebihan kalium (K) atau magnesium (Mg) dapat meningkatkan risiko gangguan kalsium (Ca) didukung oleh bukti antagonisme antarkation. Karena K⁺, Ca²⁺, dan Mg²⁺ menggunakan jalur serapan dan situs pengikatan yang serupa pada membran akar, kelebihan salah satu kation dapat menekan serapan kation lain (Rietra et al., 2017). Namun, hubungan tersebut bersifat kontekstual dan tidak selalu menghasilkan gejala pada semua spesies, kultivar, atau kondisi budidaya.
Terkait blossom end rot, defisiensi Ca bersifat lokal pada jaringan buah distal dan lebih erat dikaitkan dengan ketidakseimbangan antara permintaan Ca selama ekspansi sel dengan pasokan Ca melalui xilem, bukan semata-mata kadar Ca total dalam larutan. Pada tomat, kejadian BER berkorelasi positif dengan rasio Mg:Ca dan K:Ca dalam buah, sehingga kelimpahan relatif K dan Mg terhadap Ca berperan penting dalam risiko gangguan tersebut (de Freitas et al., 2013; Ho & White, 2005).
Untuk tipburn, pertumbuhan cepat yang didorong oleh nitrogen (N) tinggi dapat memperbesar kebutuhan Ca pada daun muda. Namun, kejadian gangguan juga sangat dipengaruhi oleh laju transpirasi, kelembapan udara, dan posisi daun dalam tajuk; daun muda yang terlindungi dan bertranspirasi rendah cenderung menerima pasokan Ca melalui xilem lebih sedikit dibandingkan daun luar yang bertranspirasi tinggi (Frantz et al., 2004; Olle & Bender, 2009).
6.2 N Terlalu Rendah Dibandingkan Hara Lain
Defisiensi nitrogen (N) relatif ditandai oleh klorosis yang awalnya muncul pada daun tua, penurunan luas daun, serta berkurangnya jumlah daun dan ukuran tanaman. Pada basil hidroponik, defisiensi N menghasilkan klorosis seragam pada daun tua dan penurunan ukuran tanaman; pola serupa juga dilaporkan sebagai ciri umum defisiensi N pada tanaman (Mattson & Merrill, 2016).
Pada selada hidroponik, konsentrasi N-nitrat sebesar 15,0 mmol·L⁻¹ menghasilkan produktivitas tertinggi. Peningkatan konsentrasi NO₃⁻ dalam larutan juga meningkatkan jumlah daun, diameter batang, panjang daun, dan biomassa kering secara linear (Wenceslau et al., 2021). Pada tomat, suplai N yang rendah menurunkan hasil pada musim tanam dingin–semi, tetapi pada musim panas–gugur responsnya dapat berbeda dalam kisaran NO₃⁻ 1–25 mmol·L⁻¹. Temuan tersebut menunjukkan bahwa ambang batas kebutuhan N tidak bersifat tetap, melainkan bergantung pada musim, ketersediaan radiasi, dan laju pertumbuhan tanaman (Sonneveld & Voogt, 2009).
6.3 Kasus Khusus: Tipburn pada Sayuran Daun
Tipburn adalah gangguan fisiologis yang tampak sebagai bercak nekrotik cokelat pada ujung dan tepi daun muda, khususnya daun bagian dalam yang masih tertutup dan memiliki tingkat transpirasi rendah. Gangguan ini berkaitan dengan defisiensi kalsium (Ca) lokal ketika laju ekspansi sel melampaui pasokan Ca melalui aliran xilem. Secara umum, hal ini berkaitan dengan ketidakmampuan tanaman mentranslokasi Ca dalam jumlah memadai ke bagian yang terkena (Olle & Bender, 2009).
Penambahan Ca melalui fertigasi/larutan nutrisi tidak selalu efektif mengurangi tipburn karena distribusi Ca dalam tanaman sangat bergantung pada aliran transpirasi. Ca cenderung terakumulasi pada daun tua yang bertranspirasi tinggi, sementara daun muda yang terlindungi di dalam tajuk menerima pasokan Ca lebih sedikit meskipun kadar Ca larutan memadai (Olle & Bender, 2009). Oleh karena itu, pengendalian tipburn lebih menekankan pengaturan EC, rasio K:Ca, kelembapan udara, sirkulasi udara, dan laju pertumbuhan. Aplikasi Ca daun dapat menjadi pelengkap pada kondisi tertentu, tetapi bukan pengganti pengelolaan iklim mikro.
Pada selada hidroponik, Huett (1994) menunjukkan bahwa penurunan electrical conductivity (EC) dari 3,6 menjadi 0,4 mS·cm⁻¹ mengurangi jumlah daun yang mengalami tipburn dari 23,1 menjadi 4,4 helai per tanaman. Penurunan rasio K:Ca larutan dari 3,5:1,0 menjadi 1,25:1,0 juga menurunkan keparahan tipburn dari 15,2 menjadi 12,3 helai per tanaman, meskipun dampaknya lebih kecil dibandingkan penurunan EC.
Menurunkan EC jauh lebih efektif menekan tipburn daripada menurunkan rasio K:Ca
Efek penurunan EC
Dari 23,1 menjadi 4,4 helai per tanaman — penurunan sekitar 81% daun bertipburn.
Efek penurunan K:Ca
Dari 15,2 menjadi 12,3 helai per tanaman — dampaknya jauh lebih kecil dibanding penurunan EC.
Titik bobot segar maksimum
Bobot segar maksimum selada tercapai pada EC 1,6 mS·cm⁻¹.
6.4 Kasus Khusus: Blossom End Rot sebagai Akibat Kegagalan Rasio N–Ca–K
Blossom end rot (BER) bukan penyakit infeksi dan bukan pula semata-mata defisiensi kalsium (Ca) dalam tanah atau larutan hara. Gangguan ini merupakan kelainan fisiologis yang berkaitan dengan defisiensi Ca secara lokal pada jaringan distal buah selama periode ekspansi sel yang cepat. Karena Ca terutama diangkut melalui xilem dan mengikuti aliran transpirasi, pasokan Ca ke buah dapat terbatas ketika daun yang bertranspirasi lebih aktif menarik sebagian besar aliran xilem; akibatnya, bagian distal buah yang bertranspirasi rendah menjadi lebih rentan mengalami defisiensi Ca lokal (Ho & White, 2005; Olle & Bender, 2009).
Tiga sisi pemicu Blossom End Rot: ambang jaringan, rasio hara, dan lingkungan
µmol·g⁻¹ bobot segar
Risiko BER meningkat kritis ketika konsentrasi Ca larut air pada bagian distal buah segar turun di bawah 0,20 µmol·g⁻¹ bobot segar.
Ca:Mg terendah
Kelebihan K, Mg, Na⁺, dan NH₄⁺ relatif terhadap Ca menekan serapan serta transportasi Ca. BER hanya teramati pada rasio Ca:Mg terendah, dan meningkat seiring kenaikan K (Nzanza, 2006).
Faktor lingkungan utama
Kejadian BER berkorelasi dengan produk radiasi harian rata-rata dan suhu harian sepanjang tahun; suhu menginduksi BER tanpa memandang kultivar dan perlakuan salinitas (Ho et al., 1993).
Tiga temuan kuantitatif berikut paling relevan untuk pengelolaan rasio:
Pertama, dari sisi ambang jaringan, risiko BER meningkat secara kritis ketika konsentrasi Ca larut air pada bagian distal buah segar turun di bawah 0,20 µmol·g⁻¹ bobot segar. Yoshida et al. (2014) juga menunjukkan bahwa kadar Ca buah dipengaruhi oleh musim tanam; pada perlakuan standar, kadar Ca total buah dilaporkan sebesar 0,72; 0,53; dan 0,35 µmol·g⁻¹ bobot segar pada musim dingin, semi, dan panas, berturut-turut.
Kedua, dari sisi rasio hara, kelebihan kalium (K), magnesium (Mg), natrium (Na⁺), dan amonium (NH₄⁺) relatif terhadap Ca dapat menekan serapan serta transportasi Ca dan dengan demikian meningkatkan risiko BER. Nzanza (2006) menemukan bahwa rasio Ca:Mg 20:1 menurunkan pH buah, keasaman titratable (titratable acidity), total padatan terlarut (total soluble solids), persentase buah kelas satu, dan hasil bahan kering; hanya rasio Ca:Mg di bawah 1 yang menurunkan hasil dan mutu buah secara signifikan. BER hanya teramati pada rasio Ca:Mg terendah, yaitu 8:12, dan kejadiannya meningkat seiring kenaikan kadar K dalam larutan.
Ketiga, dari sisi lingkungan, Ho et al. (1993) menemukan bahwa kejadian BER berkorelasi dengan produk radiasi harian rata-rata dan suhu harian sepanjang tahun; suhu merupakan faktor lingkungan utama yang menginduksi BER tanpa memandang kultivar dan perlakuan salinitas. Adams dan Ho (1993) melengkapi temuan tersebut dengan menunjukkan bahwa serapan Ca berkorelasi kuat dengan radiasi surya dan suhu akar, sedangkan salinitas menurunkan serapan Ca secara linear.
Dengan demikian, rasio N:Ca dan K:Ca yang tidak seimbang, salinitas tinggi, serta vapor pressure deficit (VPD) ekstrem merupakan faktor yang saling memperkuat. Pencegahan BER menuntut pengelolaan formulasi hara, electrical conductivity (EC), irigasi, suhu, radiasi, dan kelembapan udara secara terpadu, khususnya pada dataran rendah tropis dengan radiasi dan suhu siang hari yang tinggi (Adams & Ho, 1993; Dorais et al., 2001; Ho et al., 1993).
6.5 Kasus Blossom End Rot: Peran Rasio N dan Ca
Blossom end rot (BER) pada tomat dan paprika sering dijelaskan sebagai defisiensi kalsium (Ca) pada ujung distal buah. Namun, Ho dan White (2005) menegaskan bahwa BER merupakan gangguan seluler pada jaringan buah muda yang mengalami ekspansi sel cepat, umumnya setelah pembentukan buah ketika laju pertumbuhan relatif buah mencapai titik tertinggi. Mereka juga mencatat bahwa konsentrasi Ca total buah yang kritis belum ditemukan secara mutlak, sehingga kadar Ca buah tidak selalu menjadi prediktor yang memadai bagi kejadian BER.
Penjelasan kritis · Saure (2014)
Saure (2014) memberikan penjelasan yang lebih kritis dengan menyimpulkan bahwa penurunan Ca²⁺ apoplastik baru teramati setelah gejala BER muncul. Dalam kerangka ini, defisiensi Ca lebih merupakan akibat dari kerusakan membran akibat stres abiotik seperti salinitas, kekeringan, intensitas cahaya tinggi, suhu tinggi, dan nutrisi amonium, daripada penyebab awal BER.
Implikasinya bagi pengelolaan rasio nitrogen (N) dan Ca adalah bahwa rasio tersebut bekerja secara tidak langsung. Suplai N berlebih pada fase awal dapat mendorong pertumbuhan vegetatif berlebihan sehingga Ca lebih banyak dialokasikan ke daun daripada buah yang sedang berkembang (Hochmuth & Hochmuth, 2018). Ion kalium (K⁺), amonium (NH₄⁺), dan natrium (Na⁺) yang berlebih juga dapat menekan serapan Ca oleh akar, sementara kelembapan tinggi menurunkan transpirasi dan membatasi pengiriman Ca melalui xilem (Dorais et al., 2001; Olle & Bender, 2009).
Dengan demikian, rasio Ca/N yang tampak memadai dalam larutan tidak menjamin Ca mencapai ujung buah. Pengendalian BER menuntut pengelolaan menyeluruh atas rasio K/Ca, bentuk dan jumlah N, EC (kekuatan ionik) atau salinitas, irigasi, suhu, radiasi, serta kelembapan udara—bukan pengaturan Ca/N semata (Adams & Ho, 1993; Dorais et al., 2001; Ho & White, 2005).
Bagian Ketiga
Temuan Spesifik Nilai Rasio dari Penelitian
Rekomendasi rasio pada Bagian 5 disusun melalui sintesis beberapa kerangka formulasi larutan hara. Keabsahan nilai kerja rasio tersebut bertumpu pada bukti eksperimental mengenai respons tanaman terhadap manipulasi rasio atau konsentrasi hara. Bagian ini merangkum temuan kuantitatif dari penelitian primer yang menjadi rujukan utama naskah (Tabel 7.1). Penelitian yang dimasukkan memenuhi tiga kriteria, yaitu perlakuan berupa manipulasi rasio atau konsentrasi hara dalam larutan terkontrol, pelaporan respons tanaman yang dapat dikaitkan dengan rasio terhadap N, serta relevansi komoditas dan sistem budidaya dengan sayuran daun atau sayuran berbuah.
Empat kelompok bukti yang menopang rekomendasi rasio
EC & rasio K:Ca pada selada
Respons electrical conductivity dan rasio K:Ca terhadap pertumbuhan, serapan hara, dan keparahan tipburn.
Huett (1994)Ca–K & insiden BER tomat
Keseimbangan Ca–K dan kejadian blossom end rot pada tiga musim tanam.
Yoshida et al. (2014)Bentuk N: nitrat vs amonium
Rasio bentuk N serta konsentrasi nitrat dan amonium pada sayuran daun.
Schiefloe et al. (2023); Urlić et al. (2017); Wenceslau et al. (2021); Zhu et al. (2020)Perbedaan antarkomoditas
Kebutuhan dan serapan hara berbeda antarkomoditas meskipun larutan berkomposisi identik.
Xaxiri et al. (2023)Cakupan bukti mencakup empat kelompok: respons electrical conductivity (EC) dan rasio K:Ca pada selada (Huett, 1994); keseimbangan Ca–K dan kejadian blossom end rot pada tomat (Yoshida et al., 2014); rasio bentuk N serta konsentrasi nitrat dan amonium pada sayuran daun (Schiefloe et al., 2023; Urlić et al., 2017; Wenceslau et al., 2021; Zhu et al., 2020); serta perbedaan kebutuhan dan serapan hara antarkomoditas pada larutan dengan komposisi identik (Xaxiri et al., 2023). Bukti tambahan menunjukkan bahwa komposisi hara jaringan dapat berubah meskipun larutan awal sama, terutama karena perbedaan pH, alkalinitas, dan dinamika zona perakaran (Anderson et al., 2017). Mayoritas percobaan dilakukan di luar wilayah tropis. Oleh karena itu, nilai pada Tabel 7.1 perlu dibaca sebagai jangkar kuantitatif yang disesuaikan terhadap suhu, radiasi, kelembapan, dan VPD setempat, bukan sebagai angka final yang berlaku universal.
| Penelitian | Komoditas / sistem | Perlakuan rasio atau konsentrasi | Temuan kunci |
|---|---|---|---|
| Huett (1994) | Selada, kultur resirkulasi | EC 0,4–3,6 mS·cm⁻¹; K:Ca 1,00:3,50 hingga 3,50:1,00 | Bobot segar maksimum pada EC 1,6 mS·cm⁻¹; tipburn menurun dari 23,1 menjadi 4,4 helai per tanaman saat EC turun dari 3,6 menjadi 0,4 mS·cm⁻¹; menurun dari 15,2 menjadi 12,3 helai saat K:Ca turun dari 3,5:1,0 menjadi 1,25:1,0 |
| Yoshida et al. (2014) | Tomat, tiga musim tanam | Variasi rasio Ca/K dalam larutan | Kejadian BER meningkat ketika ketersediaan Ca relatif terhadap K menurun, terutama pada musim semi dan panas; risiko menjadi kritis ketika Ca larut air pada bagian distal buah di bawah 0,20 µmol·g⁻¹ bobot segar |
| Cardoso et al. (2017) | Timun, NFT | N:K 1:0,5; 1:1,0; 1:2,0; 1:3,0 | Rasio N:K 1:2,0 dan 1:3,0 menghasilkan hasil lebih tinggi pada kedua hibrida; peningkatan K tidak mengubah panjang buah, tetapi meningkatkan diameter dan bobot buah |
| Wenceslau et al. (2021) | Selada, rakit apung, Amazon Selatan | NO3- 2,5–15,0 mmol·L⁻¹; variasi NO3-:NH4+ | Produktivitas tertinggi diperoleh pada NO3- 15,0 mmol·L⁻¹; proporsi NH4+ yang terlalu tinggi berisiko menekan pertumbuhan |
| Zhu et al. (2020) | Selada, persemaian | NO3-:NH4+ 0:100; 25:75; 50:50; 75:25; 100:0 | Rasio 75:25 menghasilkan bobot segar tajuk dan akar yang lebih tinggi, kandungan klorofil lebih tinggi, serta struktur kloroplas yang lebih baik |
| Schiefloe et al. (2023) | Selada, sistem hidroponik kedap gas | NH4+:N 0,10–0,12 dan 0,49–0,50 mol·mol⁻¹ | Rasio NH4+:N 0,50 menghasilkan biomassa tajuk sekitar 50% lebih rendah dibandingkan rasio 0,10; konsumsi NH4+ meningkat seiring proporsinya, tetapi pertumbuhan menurun |
| Urlić et al. (2017) | Salad rocket (Eruca sativa), budidaya musiman | NO3- 3 dan 12 mmol·L⁻¹; NH4+ 0; 1,5; 6 mmol·L⁻¹ | Peningkatan NO3- meningkatkan pertumbuhan; peningkatan NH4+ menurunkan kadar nitrat daun; respons bergantung pada musim |
| Savvas et al. (2008) | Tomat, cabai, terong | Kajian interaksi kation dan gangguan fisiologis | K yang tinggi dapat menekan serapan Ca dan Fe; Ca yang tinggi dapat menekan P, Mg, Fe, Zn, dan Mn; Mg yang tinggi dapat menekan K, Ca, dan Fe |
| Xaxiri et al. (2023) | Tomat, terong, timun; sistem apung | Komposisi larutan identik antarkomoditas | Konsentrasi serapan hara berbeda nyata antarspesies untuk hampir semua hara kecuali N; serapan P timun lebih rendah daripada tomat dan terong; serapan K timun lebih rendah pada fase vegetatif |
| Frasetya et al. (2019) | Selada, rakit apung, Indonesia tropis | Lima formula larutan hara | Formula Sutiyoso dilaporkan paling efektif untuk selada tropis; komposisi N, P, K, Ca, dan Mg formula tersebut menjadi dasar perbandingan rasio |
| Neocleous & Savvas (2019) | Selada, larutan resirkulasi | Pembatasan pasokan P | Pembatasan P menurunkan fotosintesis, biomassa, kualitas nutrisi, dan status hara tanaman; kelebihan P tidak selalu meningkatkan hasil karena terbatas oleh luxury uptake |
| Anderson et al. (2017) | Selada butterhead, DWC | Perbedaan pH dan alkalinitas larutan | Komposisi hara jaringan berubah meskipun larutan awal sama; pH dan alkalinitas memengaruhi serapan hara serta pertumbuhan |
Geser tabel ke samping untuk melihat semua kolom →
Alat bantu interaktif
Kalkulator titik kerja rasio hara
Geser target N dan pilih fase untuk melihat rentang P/N, K/N, Ca/N, Mg/N, dan S/N yang setara dengan jumlah mg·L⁻¹. Nilai dihitung langsung dari rentang pada Tabel 5.1 dan 5.2 — gunakan sebagai titik awal, bukan angka final.
Bagian Keempat
Faktor-Faktor yang Mempengaruhi Nilai Rasio
Temuan primer pada Bagian 7 diperoleh dalam kondisi eksperimental yang terkendali. Oleh karena itu, nilai rasio yang dihasilkannya tidak dapat diterapkan secara konstan ke kebun atau rumah kaca tanpa penyesuaian. Bagian ini menguraikan faktor-faktor yang menggeser nilai rasio optimal beserta arah pengaruhnya (Tabel 8.1). Faktor-faktor tersebut dapat dikelompokkan menjadi tiga kategori: faktor tanaman, faktor lingkungan, dan faktor sistem budidaya.
Kelompok pertama bersifat tanaman, meliputi spesies dan famili, kultivar, serta stadia pertumbuhan. Spesies yang berbeda dapat menunjukkan pola serapan hara yang berbeda meskipun menerima larutan dengan komposisi identik (Xaxiri et al., 2023). Kultivar juga berbeda dalam toleransi terhadap gangguan Ca lokal, termasuk tipburn pada selada (Huett, 1994; Olle & Bender, 2009), sedangkan stadia pertumbuhan menentukan pergeseran kebutuhan hara, khususnya peningkatan kebutuhan K relatif terhadap N pada fase pembuahan tomat (Kroggel & Kubota, 2018; Van der Lugt, 2017).
Kelompok kedua bersifat lingkungan, meliputi radiasi, suhu, VPD, kelembapan udara, dan suhu zona akar. Faktor-faktor tersebut bekerja melalui perubahan laju transpirasi, pergeseran nisbah serapan hara terhadap air, serta perubahan kapasitas transportasi Ca melalui xilem (Adams & Ho, 1993; Dorais et al., 2001; Olle & Bender, 2009).
Kelompok ketiga bersifat sistemik, meliputi EC dan tekanan osmotik, sistem terbuka atau tertutup, kualitas air irigasi, jenis substrat, bentuk N, serta metode formulasi larutan. Interaksi antarfaktor tersebut menjadi dasar penyesuaian sintesis pada Bagian 5. Nilai rasio yang direkomendasikan harus dipahami sebagai titik kerja awal yang dapat digeser sesuai faktor dominan di lokasi budidaya, bukan sebagai angka baku yang berlaku secara universal.
Peta 13 faktor penentu nilai rasio optimal dalam tiga kategori
3 faktor
Sifat biologis yang menentukan permintaan hara.
5 faktor
Kondisi iklim mikro yang mengubah transpirasi.
5 faktor
Desain dan pengelolaan sistem budidaya.
| Faktor | Arah pengaruh terhadap rasio | Penjelasan dan rujukan |
|---|---|---|
| Spesies dan famili | Kebutuhan relatif K, Ca, dan Mg berbeda antarspesies meskipun larutan sama | Laju dan konsentrasi serapan hara berbeda antara tomat, terong, dan timun pada larutan identik (Xaxiri et al., 2023). |
| Kultivar | Toleransi terhadap gangguan Ca lokal dan tipburn berbeda | Perbedaan sensitivitas tipburn antarkultivar selada dilaporkan dalam kajian Ca dan gangguan fisiologis sayuran (Huett, 1994; Olle & Bender, 2009). |
| Stadia pertumbuhan | K/N meningkat dari fase vegetatif ke fase pembuahan; Ca/N tetap perlu dijaga | Pada tomat, target K meningkat dari sekitar 144 mg·L⁻¹ pada fase awal menjadi 350 mg·L⁻¹ pada fase pembuahan (Kroggel & Kubota, 2018; Van der Lugt, 2017). |
| Radiasi dan DLI | Kebutuhan N dan Ca meningkat; risiko tipburn dan BER meningkat | Radiasi tinggi mempercepat pertumbuhan dan meningkatkan permintaan Ca jaringan muda, tetapi juga dapat membatasi distribusi Ca ke organ bertranspirasi rendah (Adams & Ho, 1993; Huett, 1994). |
| Suhu dan VPD | EC efektif perlu diturunkan pada VPD tinggi; rasio serapan hara terhadap air bergeser | Suhu dan VPD mengubah laju transpirasi serta nisbah serapan hara terhadap air (Dorais et al., 2001; Langenfeld et al., 2022). |
| Kelembapan tinggi | Ca mungkin tidak mencapai jaringan muda meskipun Ca larutan cukup | Transpirasi rendah membatasi aliran massal Ca melalui xilem ke daun muda dan buah (Olle & Bender, 2009). |
| Suhu zona akar | Serapan hara dan oksigen terlarut dapat terganggu pada suhu tinggi | Suhu akar memengaruhi respirasi, permeabilitas membran, dan serapan ion; efeknya berinteraksi dengan kualitas air serta aerasi (Dorais et al., 2001; Sonneveld & Voogt, 2009). |
| EC dan tekanan osmotik | Serapan air dan Ca menurun pada EC tinggi; risiko BER meningkat | EC tinggi meningkatkan tekanan osmotik larutan dan dapat menekan serapan Ca, sehingga memperbesar risiko gangguan Ca lokal (Dorais et al., 2001; Adams & Ho, 1993). |
| Sistem terbuka vs tertutup | Pada sistem tertutup, rasio suplai harus mendekati rasio serapan tanaman | Ketidaksesuaian rasio suplai dengan rasio serapan menyebabkan akumulasi atau deplesi ion di zona perakaran (Savvas & Gruda, 2018; Voogt, 2002). |
| Kualitas air: Na+, Cl-, HCO3- | Na+ dan Cl- menaikkan EC tanpa manfaat hara; HCO3- menaikkan pH dan menuntut koreksi asam | Kualitas air irigasi harus diperhitungkan dalam formulasi karena memengaruhi EC, pH, dan keseimbangan ion zona perakaran (Savvas & Gruda, 2018; Van der Lugt, 2017). |
| Substrat | Substrat organik dapat menyumbang N, K, dan Ca; substrat inert umumnya tidak | Jenis media memengaruhi ketersediaan, retensi, dan dinamika hara di zona perakaran (Sonneveld & Voogt, 2009). |
| Bentuk N: NO3- vs NH4+ | NH4+ dapat memperketat rasio Ca/N dan Mg/N secara efektif | NH4+ berkompetisi dengan kation divalen dan dapat menurunkan pH rizosfer, sehingga memengaruhi serapan Ca dan Mg (Van der Lugt, 2017; Zhu et al., 2020). |
| Metode formulasi | Rasio larutan suplai tidak selalu sama dengan rasio efektif di zona akar | Formulasi perlu dikonversi terhadap EC, kualitas air, fraksi drainase, dan target konsentrasi serapan (Savvas & Gruda, 2018; Voogt, 2002). |
Geser tabel ke samping untuk melihat semua kolom →
Sumber
Daftar Pustaka
Adams, P., & Ho, L. C. (1993). Effects of environment on the uptake and distribution of calcium in tomato and on the incidence of blossom-end rot. Plant and Soil, 154(1), 127–132. https://doi.org/10.1007/BF00011081
Anderson, T. S., Martini, M. R., De Villiers, D., & Timmons, M. B. (2017). Growth and tissue elemental composition response of butterhead lettuce (Lactuca sativa, cv. Flandria) to hydroponic conditions at different pH and alkalinity. Horticulturae, 3(3), 41. https://doi.org/10.3390/horticulturae3030041
Bugbee, B. (2004). Nutrient management in recirculating hydroponic culture. In M. Nichols (Ed.), Proceedings of the South Pacific Soilless Culture Conference (Acta Horticulturae No. 648, pp. 99–112). International Society for Horticultural Science. https://doi.org/10.17660/ActaHortic.2004.648.12
Cardoso, D. S. C. P., Sediyama, M. A. N., Poltronieri, Y., Fonseca, M. C. M., & Neves, Y. F. (2017). Effect of concentration and N:K ratio in nutrient solution for hydroponic production of cucumber. Revista Caatinga, 30(4), 818–824. https://doi.org/10.1590/1983-21252017v30n401rc
de Freitas, S. T., Shackel, K. A., & Mitcham, E. J. (2013). Comparative effects of partial root-zone drying and deficit irrigation on incidence of blossom-end rot in tomato under varied calcium rates. Journal of Experimental Botany, 64(7), 2107–2119. https://doi.org/10.1093/jxb/ert067
Frantz, J. M., Ritchie, G., Cometti, N. N., Robinson, J., & Bugbee, B. (2004). Exploring the Limits of Crop Productivity: Beyond the Limits of Tipburn in Lettuce. Jthe American Society for Horticultural Science, 129(3), 331–338. https://doi.org/10.21273/JASHS.129.3.331
Dorais, M., Papadopoulos, A. P., & Gosselin, A. (2001). Influence of electric conductivity management on greenhouse tomato yield and fruit quality. Agronomie, 21(4), 367–383. https://doi.org/10.1051/agro:2001131
Hochmuth, G. J., & Hochmuth, R. C. (2018). Blossom-end rot in bell pepper: Causes and prevention (Publication SS497). University of Florida Institute of Food and Agricultural Sciences. https://ask.ifas.ufl.edu/publication/SS497
Ho, L. C., & White, P. J. (2005). A cellular hypothesis for the induction of blossom-end rot in tomato fruit. Annals of Botany, 95(4), 571–581. https://doi.org/10.1093/aob/mci065journals.ashs
Ho, L. C., Belda, R., Brown, M., Andrews, J., & Adams, P. (1993). Uptake and transport of calcium and the possible causes of blossom-end rot in tomato. Journal of Experimental Botany, 44(2), 509–518. https://doi.org/10.1093/jxb/44.2.509
Huett, D. O. (1994). Growth, nutrient uptake and tipburn severity of hydroponic lettuce in response to electrical conductivity and K:Ca ratio in solution. Australian Journal of Agricultural Research, 45(1), 251–267. https://doi.org/10.1071/AR9940251
Kroggel, M., & Kubota, C. (2018). Hydroponic nutrient solution for optimized greenhouse tomato production (Fact Sheet HYG-1437). Ohio State University Extension. https://ohioline.osu.edu/factsheet/hyg-1437
Langenfeld, N. J., Pinto, D. F., Faust, J. E., Heins, R., & Bugbee, B. (2022). Principles of nutrient and water management for indoor agriculture. Sustainability, 14(16), 10204. https://doi.org/10.3390/su141610204
Mattson, N. S., & Merrill, T. (2016). Symptoms of common nutrient deficiencies in hydroponic basil (e-GRO Alert No. 4.4). Cornell University. https://www.e-gro.org/pdf/2016-4.pdf
Mattson, N. S., & Peters, C. (2014). A recipe for hydroponic success. Cornell University.
Neocleous, D., & Savvas, D. (2019). The effects of phosphorus supply limitation on photosynthesis, biomass production, nutritional quality, and mineral nutrition in lettuce grown in a recirculating nutrient solution. Scientia Horticulturae, 252, 379–387. https://doi.org/10.1016/j.scienta.2019.04.007
Nzanza, B. (2006). Yield and quality of tomato as influenced by differential Ca, Mg and K nutrition [Master’s thesis, University of Pretoria]. University of Pretoria Repository.
Olle, M., & Bender, I. (2009). Causes and control of calcium deficiency disorders in vegetables: A review. Journal of Horticultural Science and Biotechnology, 84(6), 577–584. https://doi.org/10.1080/14620316.2009.11512568
Rietra, R. P. J. J., Heinen, M., Dimkpa, C. O., & Bindraban, P. S. (2017). Effects of nutrient antagonism and synergism on yield and fertilizer use efficiency. Communications in Soil Science and Plant Analysis, 48(16), 1895–1920. https://doi.org/10.1080/00103624.2017.1407429
Saure, M. C. (2014). Why calcium deficiency is not the cause of blossom-end rot in tomato and pepper fruit—A reappraisal. Scientia Horticulturae, 174, 151–154. https://doi.org/10.1016/j.scienta.2014.05.020
Savvas, D., & Gruda, N. (2018). Application of soilless culture technologies in the modern greenhouse industry—A review. European Journal of Horticultural Science, 83(5), 280–293. https://doi.org/10.17660/eJHS.2018/83.5.2
Savvas, D., Ntatsi, G., & Passam, H. C. (2008). Plant nutrition and physiological disorders in greenhouse grown tomato, pepper and eggplant. European Journal of Plant Science and Biotechnology, 2(Special Issue 1), 45–61.
Schiefloe, M., Jakobsen, Ø. M., Pannico, A., Quadri, C., Jost, A. I. K., & Woltering, E. J. (2023). Effects of ammonium to nitrate ratio on lettuce cultivated in a gas-tight hydroponic facility. Life, 13(8), 1697. https://doi.org/10.3390/life13081697
Sonneveld, C., & Straver, N. (1994). Nutrient solutions for vegetables and flowers grown in water or substrates (10th ed., Series: Voedingsoplossingen Glastuinbouw No. 8). Proefstation voor Tuinbouw onder Glas.
Sonneveld, C., & Voogt, W. (2009). Plant nutrition of greenhouse crops. Springer. https://doi.org/10.1007/978-90-481-2532-6
Teagasc. (2020). Major and micro nutrient advice for productive agricultural crops. https://teagasc.ie/publications/2020/major-and-micro-nutrient-advice-for-productive-agricultural-crops-2020.php
Trejo-Téllez, L. I., & Gómez-Merino, F. C. (2012). Nutrient solutions for hydroponic systems. In T. Asao (Ed.), Hydroponics: A standard methodology for plant biological researches (pp. 1–22). InTech. https://doi.org/10.5772/37578
Urlić, B., Dumičić, G., Romić, M., & Ban, S. G. (2017). The effect of N and NaCl on growth, yield, and nitrate content of salad rocket (Eruca sativa Mill.). Journal of Plant Nutrition, 40(18), 2611–2618. https://doi.org/10.1080/01904167.2017.1381122
Van der Lugt, G. (Ed.). (2017). Nutrient solutions for greenhouse crops (Version 3). Yara, SQM, AkzoNobel, Eurofins Agro, NMI, & Geerten van der Lugt.
Voogt, W. (2002). Nutrient uptake of a year round tomato crop from a recirculating nutrient solution. In Proceedings of the XXVI International Horticultural Congress (Acta Horticulturae No. 578, pp. 79–86). International Society for Horticultural Science.
Wenceslau, D. S. L., de Oliveira, D. F., Rabelo, H. O., Ferbonink, G. F., & Gomes, L. A. A. (2021). Nitrate concentration and nitrate/ammonium ratio on lettuce grown in hydroponics in Southern Amazon. [Detail jurnal, volume, dan halaman perlu dilengkapi dari dokumen asli.]
Xaxiri, E., Darivakis, E., Karavidas, I., Ntatsi, G., & Savvas, D. (2023). Comparing the nutritional needs of two Solanaceae and one Cucurbitaceae species grown hydroponically under the same cropping conditions. Plants, 12(20), 3642. https://doi.org/10.3390/plants12203642
Yoshida, Y., Irie, N., Vinh, T. D., Ooyama, M., Tanaka, Y., Yasuba, K., & Goto, T. (2014). Incidence of blossom-end rot in relation to the water-soluble calcium concentration in tomato fruits as affected by calcium nutrition and cropping season. Journal of the Japanese Society for Horticultural Science, 83(4), 282–289. https://doi.org/10.2503/jjshs1.CH-107
Zhu, X., Yang, R., Han, Y., Hao, D., & Zhang, Y. (2020). Effects of different NO3-:NH4+ ratios on the photosynthesis and ultrastructure of lettuce seedlings. Horticulture, Environment, and Biotechnology, 61(3), 459–472. https://doi.org/10.1007/s13580-020-00242-w
Artikel 3 dari 4— Rasio Unsur Hara Makro terhadap Nitrogen
Nilai Rasio yang digunakan dalam tulisan ini merupakan hasil sintesa dari literatur dan merupakan panduan bersifat umum yang perlu disesuaikan dengan dengan jenis tanaman, varietas dan kondisi spesifik di lapangan. Selalu rujuk literatur aslinya dan konsultasikan dengan ahli hidroponik anda.
Anda disarankan membaca artikel terkait interaksi unsur hara dan Komposisi Nutrisi Hidroponik sebelum membaca artikel ini